
記事
メチレンブルーと細胞呼吸を結びつけた実験
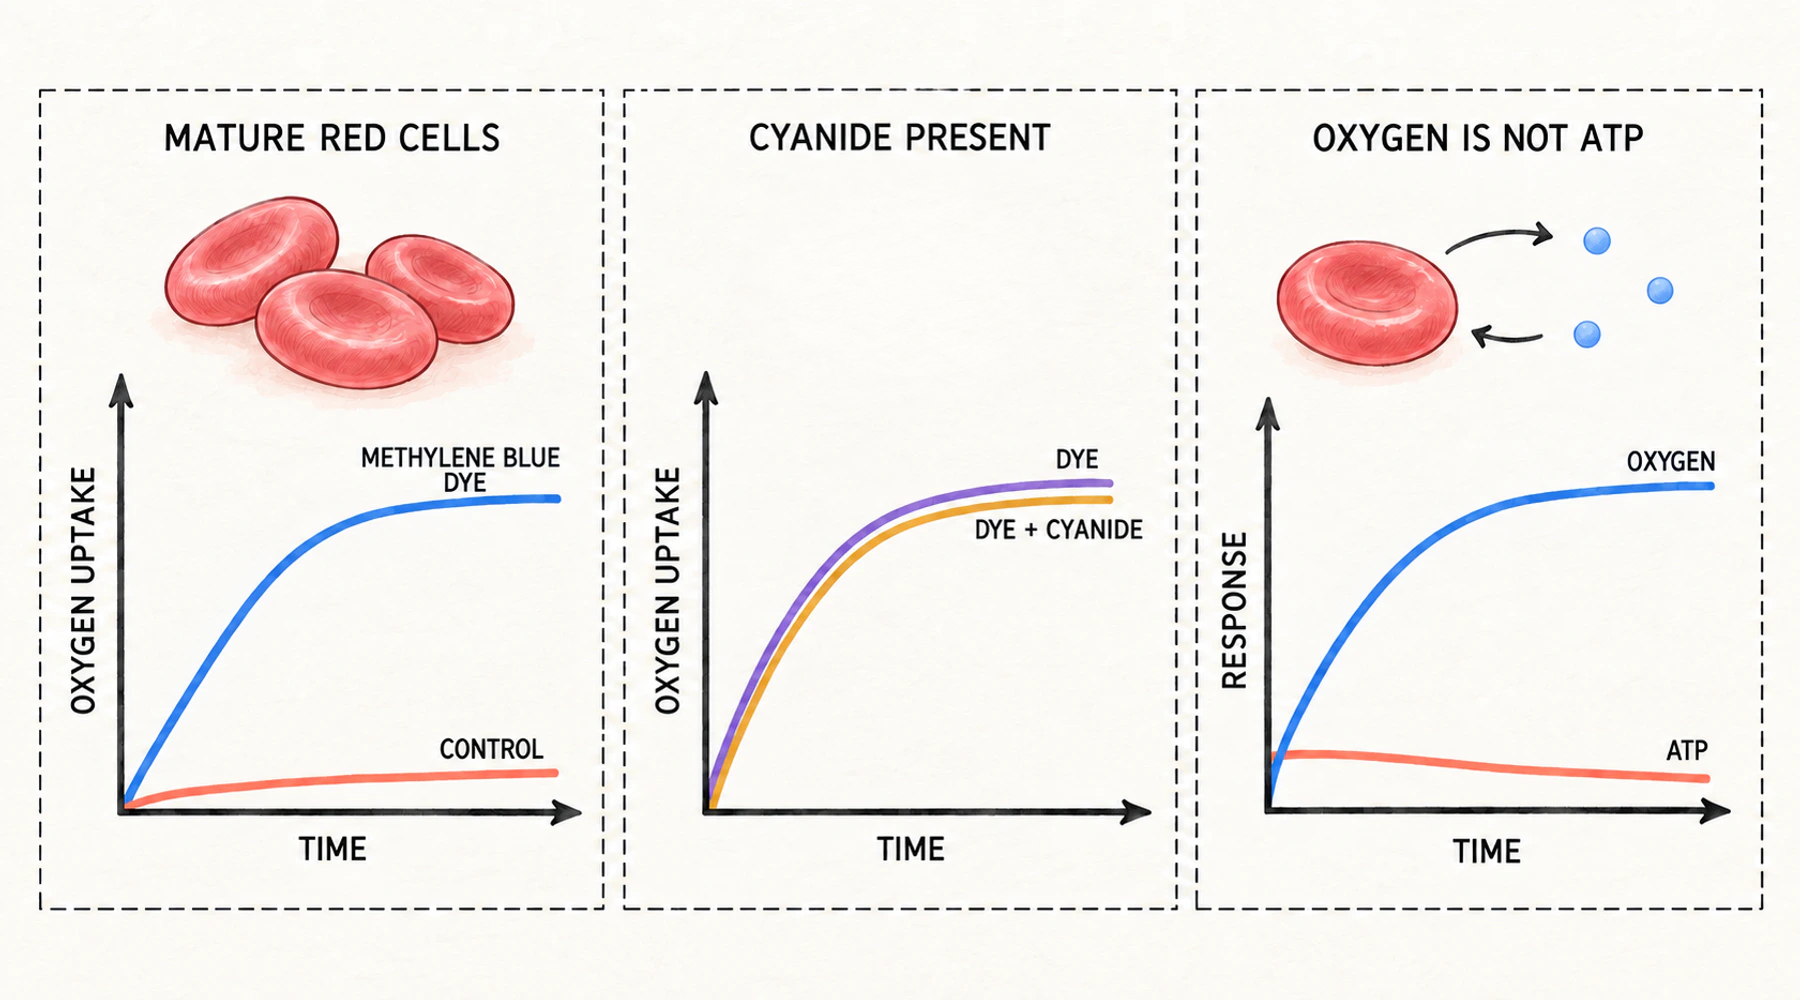
37 °Cで3時間温めた脱フィブリン化ヒト血液は、含まれる酸素の約2パーセントを消費します。培養前に少量のメチレンブルーを加えると、同じ血液は約65パーセントを消費します。細胞自体には何も変化がありません。変化したのは溶液だけです。
この数値は、ジョンズ・ホプキンス大学のGeorge HarropとE. S. Guzman Barronによる1928年の論文に由来し、メチレンブルーが細胞呼吸を改善するという広く繰り返される説明の起点です。この説明は誤りではありませんが、意味する範囲は想像されるより限定的です。
表中の数値が実際に測定しているもの
測定対象は酸素取り込みであり、ガス分析によって決定されました。HarropとBarronは、採取直後の血液を10 °Cで綿ウールを通してろ過し、白血球を除去し、試料を酸素で飽和させ、分割し、一方に色素を加え、両方を培養後に分析しました。白血球数は1立方ミリメートルあたり約1000個を超えることはほとんどありませんでした。酸素消費量は、試料の初期酸素含有量のうち消失した割合として報告されました。
彼らは二酸化炭素も測定しましたが、この方法には問題がありました。脱フィブリン化血液は、調査対象の反応とは無関係な理由により、培養最初の1時間で100 mLあたり最大2ミリモルの二酸化炭素を放出したため、全血から得られる呼吸商は使用できませんでした。Locke液中で洗浄した細胞だけが解釈可能な値を示し、それらは色素の有無にかかわらず0.73から0.80の範囲に集中しました。
この詳細は単なる豆知識ではありません。これらの論文でいう「呼吸」とは、密閉容器内でのガス交換を意味します。酸素消費と有用なエネルギー出力の差については、酸素消費がATPについて何を示し、何を示さないかで別途検討しています。
色素は、細胞が最も呼吸しない場所で最も大きな効果を示した
成熟した哺乳類赤血球では、測定可能な酸素消費はほとんどありません。一方、核を持つ鳥類赤血球では酸素消費が見られます。HarropとBarronは両方を調べ、この対比を議論の基盤にしました。
哺乳類試料では、色素によって20倍から50倍の増加が生じました。もともと呼吸しているガチョウ血液では、速度が2倍を超えることはありませんでした。開始時の呼吸量が高いほど、色素が追加できる効果は小さくなりました。
同じ傾向は1種内でも見られます。未成熟細胞を含む真性多血症患者のヒト試料では、色素なしで酸素の11.3パーセントを消費しました。これは健康な提供者から得た洗浄細胞の2.8パーセントと比較されます。色素を加えると63.4パーセントまで上昇しましたが、これは6倍の加速であり、正常細胞では約30倍の加速でした。色素は成熟細胞を未成熟細胞の挙動に近づけた、と著者らは説明しました。
シアン化物なら止まるはずだった
シアン化物は細胞酸化を停止させることが知られていました。HarropとBarronは、それでも色素とともにシアン化物を加えました。
牛血液の結果は代表的です。追加物なしでは、3時間で酸素含有量は22.61から22.03容積パーセントへ低下しました。メチレンブルーを加えると12.84まで低下しました。メチレンブルーと5,000分の1モルのシアン化カリウムを加えても12.74まで低下しました。色素の作用はほぼ影響を受けませんでした。
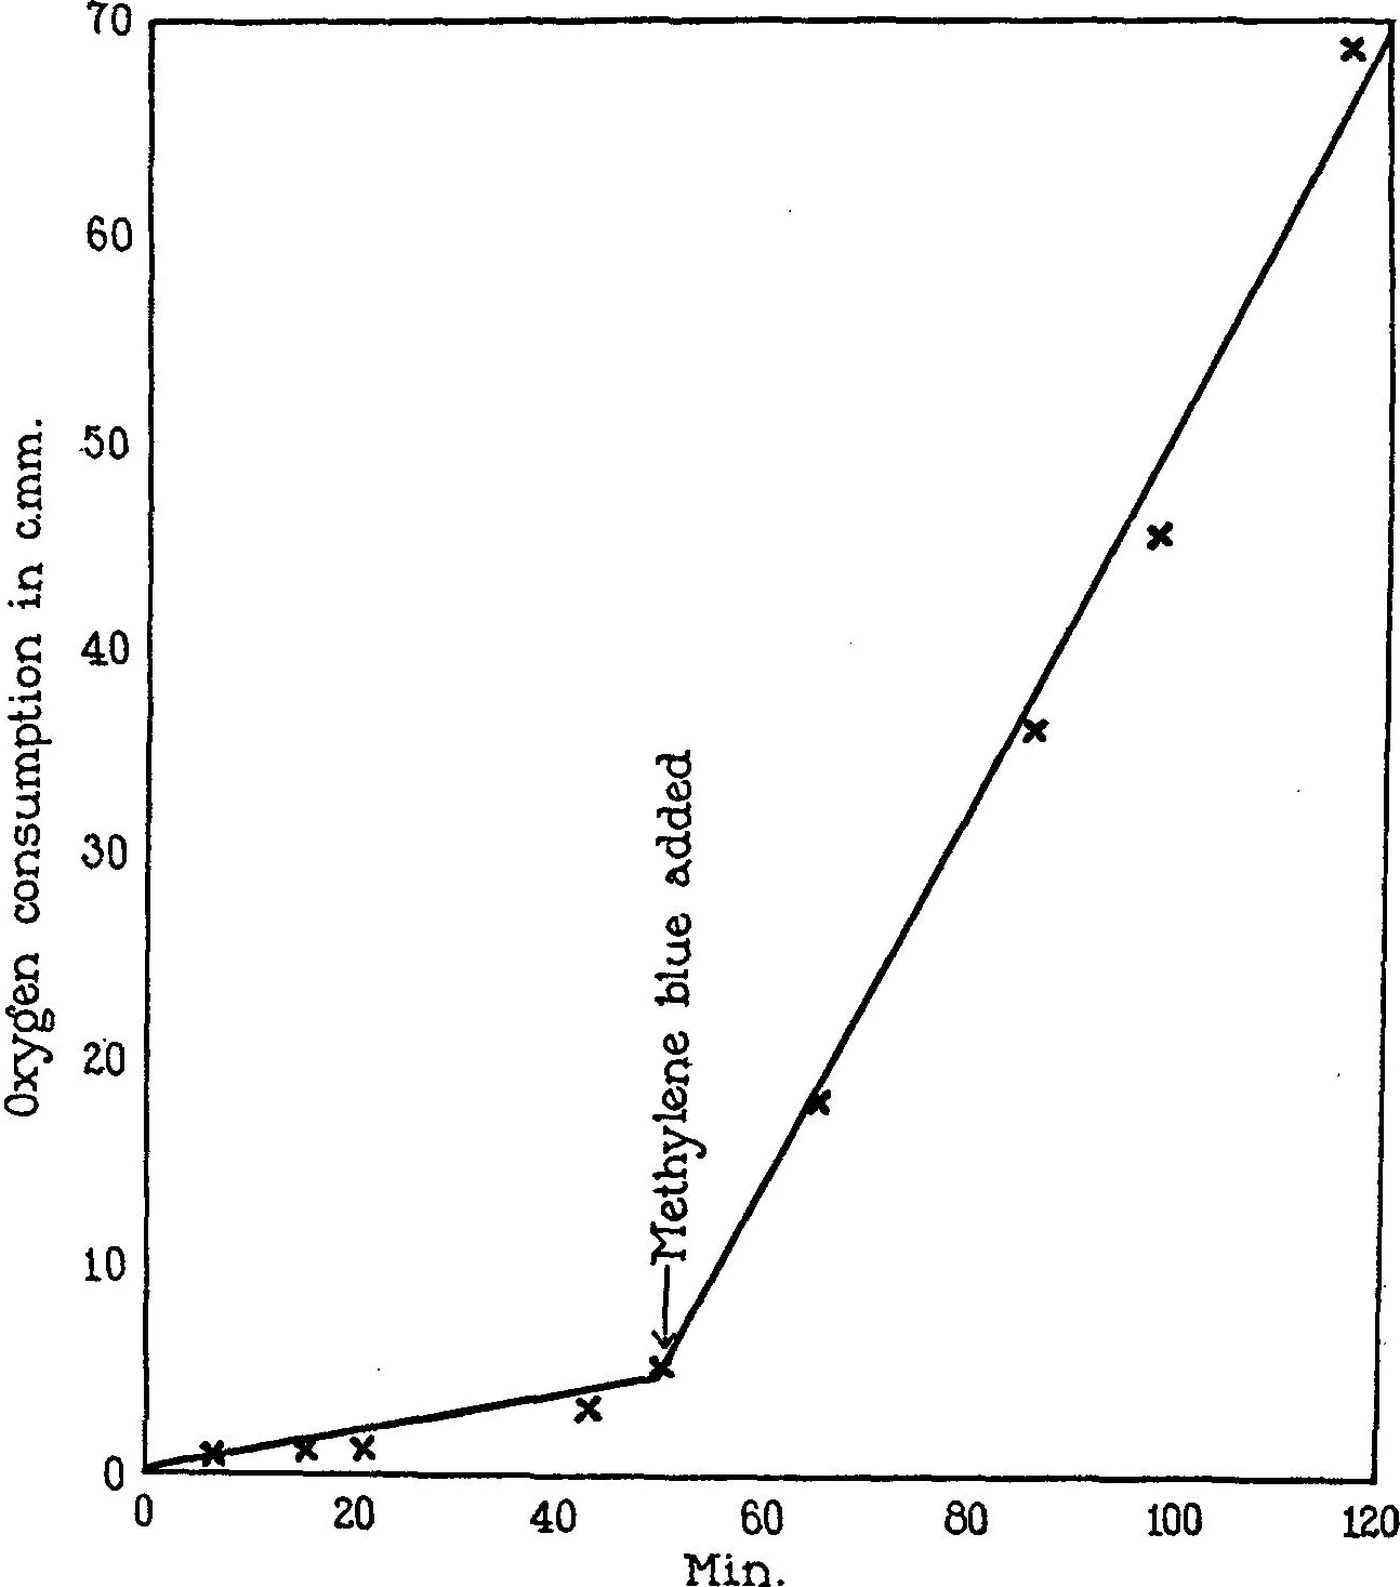
図: ヒト赤血球の連続マイクロ呼吸記録。矢印はメチレンブルー添加を示します。その前は記録線はほぼ平坦で、その後は着実に上昇します。Harrop and Barron, Journal of Experimental Medicine 48:207–223 (1928)より再掲、PMID 19869478。
彼らの結論は、色素が酸素運搬体として作用し、「成人哺乳類の非有核赤血球から消失した物質を供給する」というものでした。2年後、Rockefeller InstituteのMichaelisとSalomonは、この論争を恒久的な形で整理しました。色素の効果は「色素の偶然的な性質」なのか、それとも色素は「生物内の未知物質のモデル」なのか。その分岐はまだ完全には解決されていません。変化したのは、現在では細胞をはるかに正確に記述できるようになったことです。
肝臓抽出物も同じ作用を示した
MichaelisとSalomonは、臓器の冷水抽出物が同じ刺激作用を生じることを示しました。ラット肝臓が最も強く、次いで腎臓、脾臓、精巣でした。脳、筋肉、血清では効果はほとんど、または全くありませんでした。
続いて彼らは抽出物を一酸化炭素に対して試験しました。抽出物または色素によって誘導された呼吸は、一酸化炭素98パーセントと酸素2パーセントの混合気中でも変化しませんでした。同じガス混合物は、酵母呼吸および有核ニワトリ赤血球の呼吸を約60〜80パーセント阻害し、これは一酸化炭素感受性の呼吸酵素に関するWarburgの説明と一致しました。したがって、未同定の組織物質はWarburgの酵素ではありませんでした。
途中で複数の候補物質が除外されました。還元型グルタチオンとシステインは、それら自身の酸化に必要な酸素消費しか生じませんでした。HardenとYoungの補酵素は、筋肉に最も多く含まれるにもかかわらず筋肉で効果がほとんどなかったため除外されました。数年前に命名されたKeilinのシトクロムも同じ矛盾に直面しました。彼ら自身の提案である、活性物質が細胞核由来であるという考えは、単なる提案にすぎないと彼らは述べました。
効果には条件があった
細胞は完全な状態である必要がありました。蒸留水による溶血、または繰り返しの凍結によって、色素と抽出物の両方への反応は消失し、部分的な溶血ではその程度に応じて低下しました。
糖も必要でした。グルコース、フルクトース、スクロースは色素誘導性呼吸を維持しましたが、マンニトールは維持しませんでした。糖が存在しない場合、呼吸は全く起こらず、その過程で色素が細胞を損傷しているように見えたため、1時間または2時間後にグルコースを加えても回復しませんでした。著者らは、色素が細胞に必要な構造成分を酸化している可能性を示唆しました。
光照射は色素の効果を大きく増加させましたが、暗所でも効果は明確でした。他の還元可能な色素は異なる挙動を示しました。トルイレンブルーはメチレンブルーと同等またはそれ以上の効果を示しましたが、インジゴジスルホン酸塩はほとんど作用しませんでした。色素の酸化還元電位と効果の大きさの間に明確な関係は見られず、著者らはこれを膜透過性と毒性によるものと説明しました。
効果は呼吸ではなく発酵を追跡した
Barronの1930年の研究では、細胞懸濁液から正常ラット臓器および移植腫瘍の組織切片へ対象を移しました。
好気的解糖を行わない組織では、メチレンブルーは酸素消費に作用しないか、わずかに抑制しました。腎臓では約14パーセント、膵臓では約14パーセント、肝臓では約5パーセントでした。酸素存在下で発酵する組織では、消費量を増加させました。脾臓では約8パーセント、脳では約13パーセントでした。腫瘍での増加は、ヒト乳癌の約27パーセントからRousニワトリ肉腫の80パーセント以上まで広がり、各組織の好気的解糖量とおおよそ比例しました。
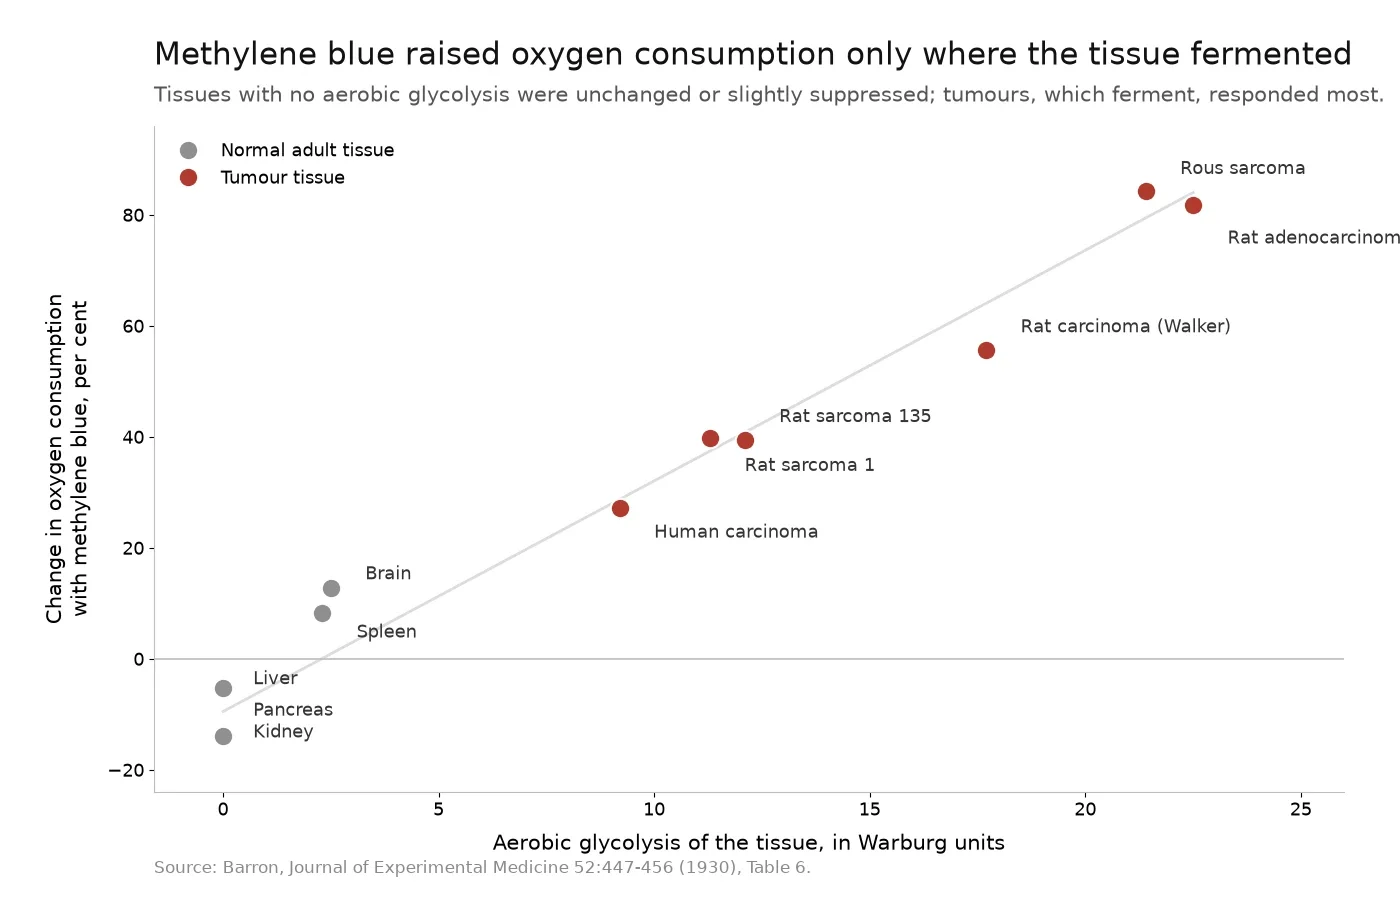
図: 各点は1種類の組織を示します。横軸は好気的解糖、縦軸はメチレンブルー後の酸素消費変化です。Barron, Journal of Experimental Medicine 52:447–456 (1930), Table 6, PMID 19869777のデータ。
その後のシアン化物実験では逆の結果が得られました。以前は反応しなかった組織でシアン化物により呼吸を遮断し、発酵が表面化すると、色素は再び酸素消費を増加させました。腎臓では約59パーセント、肝臓では約19パーセント、脾臓では約286パーセント、精巣では約200パーセントでした。
Barronは、色素が細胞または組織の発酵能力を測定する試験として利用できる可能性を提案し、最後に推測を述べました。色素を含む培地で何世代も腫瘍を培養すれば、いつか腫瘍の代謝を正常組織のものへ恒久的に変化させられるかもしれないというものです。これは1930年に書かれた研究上の問いであり、治療上の主張ではありません。
実験が測定できなかったもの
1928年と1930年において、「呼吸」とは酸素消費を意味しました。アデノシン三リン酸が初めて報告されたのは1929年であり、単離ミトコンドリアが電子移動中にリン酸をエステル化することが示されたのは1949年でした。初期のメチレンブルー論文はいずれもエネルギー生産を測定できず、また測定したとも主張していません。
細胞自体も2つ目の問題です。成熟哺乳類赤血球にはミトコンドリアがありません。網状赤血球の段階で選択的オートファジーによってミトコンドリアとリボソームを除去するため、成熟赤血球は解糖系で動作し、ペントースリン酸経路は主にNADPHのために利用され、ATP産生のためではありません。1928年の実験では、修復すべき電子伝達系は存在していませんでした。酸素を消費したものが何であれ、それは別のことを行っていました。
その正体については、現在ではかなり説明されています。メチレンブルーは細胞の還元当量から電子を受け取り、ロイコメチレンブルーとなり、分子状酸素によって再酸化されてサイクルを閉じます。ヒト赤血球では、NADPH依存性フラビン還元酵素および関連するジスルフィド還元酵素が還元段階を担います。標識グルコースを用いた1976年の研究では、色素がヘキソース一リン酸シャントを刺激すること、低濃度での効果がオキシヘモグロビンに依存すること、そして0.1 mMという高濃度では過酸化水素を生成することが示されました。酸素と反応する還元色素が生み出すものは、リン酸結合ではなく過酸化物です。
ミトコンドリアでは、一般的な要約が示すほど状況は単純ではありません。ある研究では、色素が複合体I付近から電子を受け取り、シトクロムcへ渡すとされています。別の研究では、マウス脳ミトコンドリアにおいてアンチマイシン阻害後の呼吸を回復できず、電子受容部位を複合体IIIのユビキノール結合部位に置きました。さらに別の研究では、低濃度が基礎酸素消費を増加させる一方、ADP刺激呼吸は変化しないことが示されました。最も直接的な表現は、メチレンブルーによる酸素消費は酸化的リン酸化に依存しないということです。呼吸鎖が阻害された場合でも、また呼吸鎖を持たない調製物でも、その作用は維持されました。
2つの量の差を直接測定した研究もあります。単離ラット肝臓ミトコンドリアでは、色素濃度の増加