
記事
より大きな酸素消費はより多くのATPを意味するのか?メチレンブルー研究からの教訓
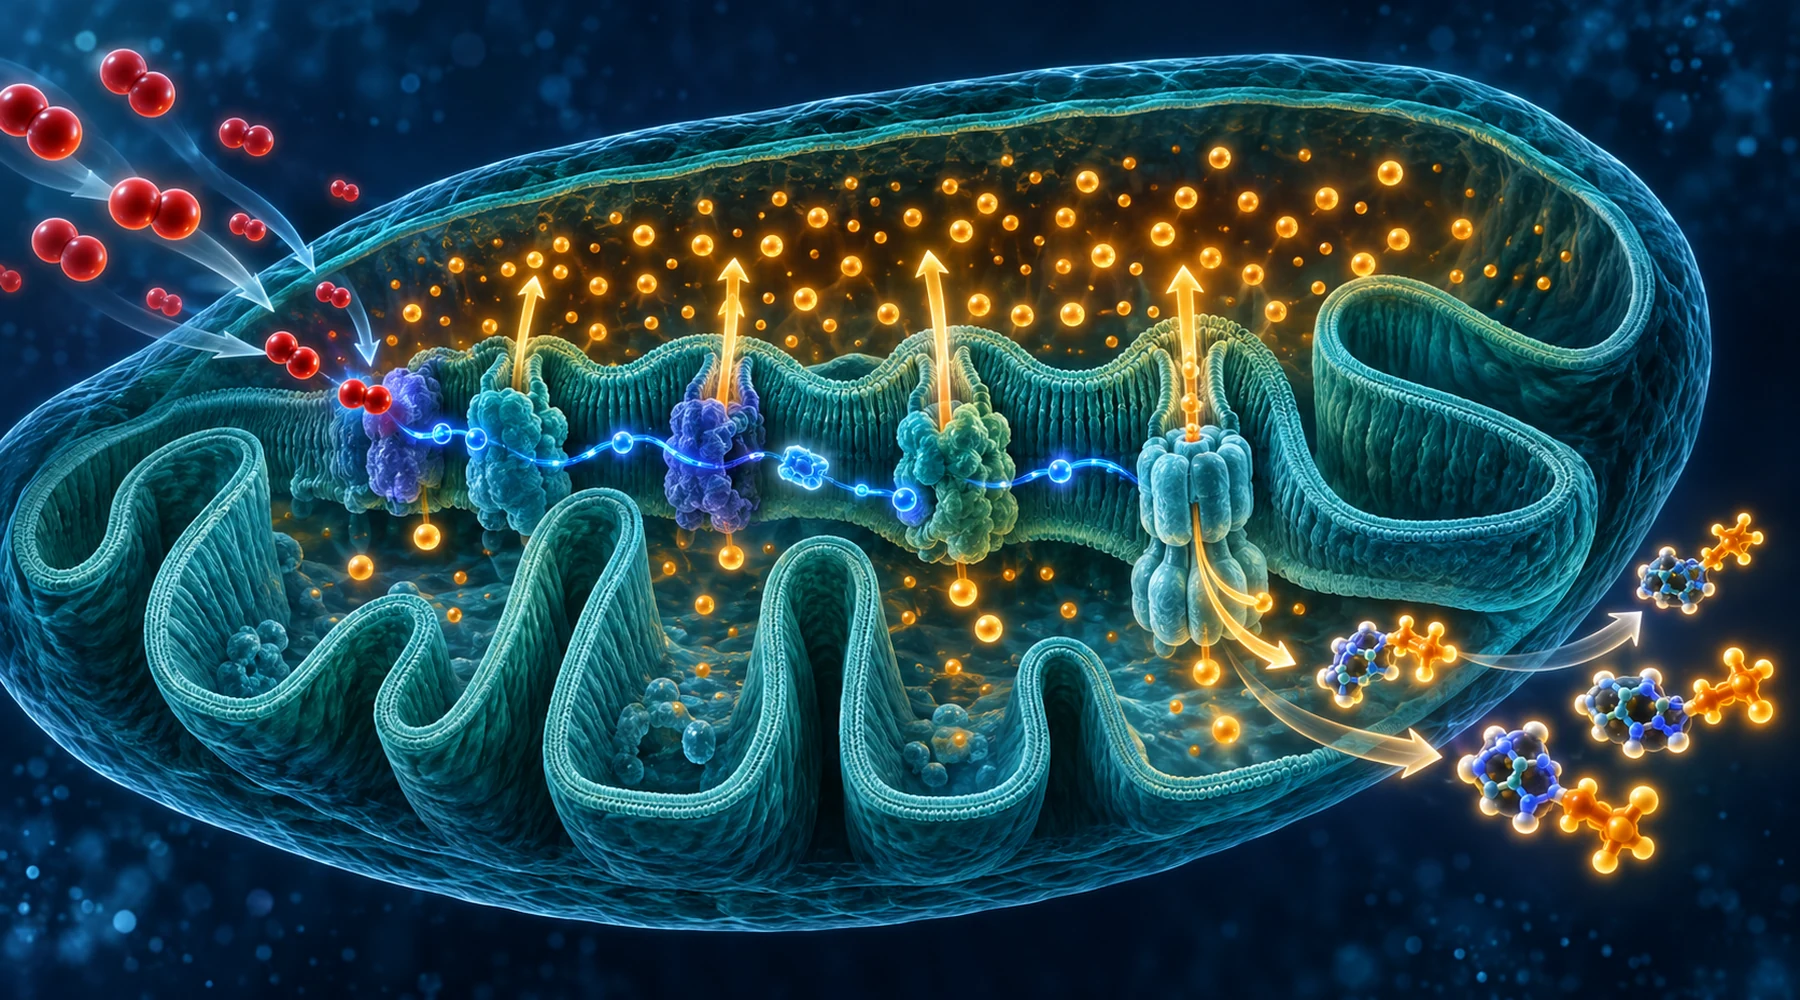
燃料はあるがADPがない状態の単離ミトコンドリアが、チャンバー内に置かれている。酸素消費はゆっくりである。ADPを加えると酸素消費は数倍に跳ね上がる。ADPがなくなるまで待つと、酸素消費は再び低下する。燃料は変化していない。変化したのはATPへの需要だけである。
この小さな流れに、この記事で扱う区別のすべてが含まれている。酸素消費は、呼吸鎖を通って酸素へ流れる電子の速度を測定する。ATP生成は、その流れのどれだけが利用可能なエネルギーとして捕捉されたかを測定する。両者は、ミトコンドリア内膜を横切るプロトン勾配という中間段階を共有しており、その勾配がATP合成にどれだけ密接に結合しているかを変える要因によって、2つの最終結果は異なる方向へ動くことがある。メチレンブルーは、この点を示す有用な例である。いくつかの調製系ではATPとともに酸素利用を増加させ、別の系ではATPが横ばいまたは低下する中で酸素利用だけを増加させることが確認されている。
まず全体的な電子リレーの仕組みを知りたい読者は、メチレンブルーが呼吸鎖を通じて電子をどのようにシャトルするかから始めることができる。また、初期の酸素実験の用語を知りたい読者は、最初の呼吸測定が実際に何を示したのかを読むことができる。
呼吸、ATP、そしてその間にある勾配
NADHとFADH2由来の電子は、複合体IおよびIIから呼吸鎖に入り、複合体IIIを通ってシトクロムcへ進み、その後複合体IVを経て酸素へ渡される。複合体I、III、IVで放出されたエネルギーは、プロトンをマトリックスから膜間腔へ送り出す。この電荷と酸性度の分離がプロトン駆動力であり、その電気的要素である膜電位が通常は主要な部分を占める。
ATP合成酵素はプロトンがマトリックスへ戻る流れを利用し、その放出エネルギーによってADPとリン酸を結合してATPを作る。したがって流れは次のようになる。
酸素消費、続いてプロトンポンプ、続いて勾配、続いてATP合成。
問題は、プロトンが別の経路でも戻れることである。ATP合成酵素を迂回するあらゆる戻りはプロトンリークである。リークがあると、膜電位を維持するために呼吸鎖は同じプロトンを再び送り出す必要があり、ATPを増やさずに酸素消費だけが増える。十分に強いリークは脱共役であり、酸素利用は増える一方でATPは横ばいまたは低下し、余剰エネルギーは熱として放出される。
State 3、state 4、呼吸調節比
この古典的な用語は、単離ミトコンドリア研究に由来する。State 3は基質とADPが存在する呼吸である。ATP合成酵素が勾配を消費し、膜電位が低下し、呼吸鎖がそれを再構築するため加速し、ATPが作られるため酸素利用は高くなる。State 4はADPがなくなった後の呼吸である。ATP合成酵素は停止状態となり、勾配が上昇し、高い膜電位がさらなるポンプ作用に抵抗するため、酸素利用はリークを補うために必要な量まで低下する。
したがって呼吸調節比は、state 3をstate 4で割った値であり、調製系がどれだけ密接に結合しているかを示す。高い比率はADPが呼吸を強く制御していることを意味する。state 4の上昇とともに比率が低下する場合、リークが優勢になっていることを示す。以下のメチレンブルー結果は、この視点で理解できる。
覚えておくべきモデルが1つある。高い膜電位は呼吸鎖を遅くする。膜電位を消散させると速度は上がる。呼吸鎖が反応するのはATPが作られているかどうかではなく、ポンピングがどれだけ困難になっているかである。
結果が同じ方向へ動く場合
最も明確な共役例は、呼吸複合体が阻害された単離モルモット脳ミトコンドリアである。100ナノモーラーから1マイクロモーラーのメチレンブルーでは、グルタミン酸+リンゴ酸、コハク酸、またはグリセロリン酸を燃料とした場合、安静時酸素消費が増加した一方、ADP刺激呼吸は変化しなかった。複合体Iまたは複合体IIIが阻害されたミトコンドリアでは、色素はATP生成をわずかに増加させ、膜電位を回復し、カルシウム取り込みを改善した。提案された経路はショートカットである。色素が阻害部位の上流で電子を受け取り、損傷した複合体を迂回してシトクロムcへ渡す。
2つ目の共役例では、まったく異なるATP供給源が使われている。ATP合成酵素を阻害した単離脳ミトコンドリアでは、メチレンブルーは試験されたすべての基質で呼吸を刺激した。しかしATP合成が増加したのは、α-ケトグルタル酸とグルタミン酸だけであり、これは2つの基質がスクシニルCoAを形成するためである。オリゴマイシンによってATP合成酵素が阻害されている場合、追加されたATPは酸化的リン酸化ではなく、クエン酸回路のスクシニルCoAリガーゼによる基質レベルリン酸化から生じた。色素は、複合体IとATP合成酵素が同時に阻害された場合にも膜電位を回復させた。ここでは酸素利用とATPは同時に動いたが、それは基質が第2のATP経路を許容した場合だけだった。コハク酸またはリンゴ酸では、呼吸は増加したが追加ATPはなかった。同じ色素、同じチャンバー、異なる燃料、異なる結果である。
結果が分離する場合
分離する例も同様に公開されており、同様に示唆に富んでいる。1997年の単離ラット肝臓ミトコンドリア研究では、メチレンブルーは密に結合したコハク酸呼吸ミトコンドリアのstate 4呼吸を加速し、呼吸調節比を低下させた。この効果は0.5マイクロモーラーから確認され、5マイクロモーラーで強く現れた。この濃度は、100ミリグラムの静脈内ボーラス投与後の血漿濃度に近い。5マイクロモーラーではミトコンドリアの膨張も起きたが、結合欠陥はより低い濃度で先に現れたため、リークは構造的損傷からではなく、その前に発生したことを示唆する。脱共役したミトコンドリアでは、色素は飽和性かつ濃度依存的に呼吸を刺激した。どちらの調製系でも酸素利用は増加した。消費酸素あたりのATP合成は増加しなかった。これは同一分子内での典型的な脱共役と電子シャトル作用である。
最も印象的な分離は網膜で見られる。AIF欠損マウスおよびロテノン処理光受容体細胞では、メチレンブルーは網膜厚、光受容体マーカー、ミトコンドリア構造を維持し、NADH/NAD比を低下させ、小胞体ストレス応答やマイトファジーを含むストレス経路を抑制した。しかしATP不足は改善しなかった。エネルギー出力の回復なしに保護が起きたことは、その効果が追加ATPではなく、酸化還元バランスとミトコンドリア完全性を介していたことを意味する。組織維持とエネルギー出力回復を同一視すると、この実験を完全に誤読することになる。
脳ミトコンドリア研究は、同じ収支表にコスト項目を追加する。同じ低濃度がバイオエネルギー機能を改善した一方で、試験したすべての条件で過酸化水素生成も増加させ、その除去速度を低下させた。これは非特異的色素ではなく、校正済みAmplexアッセイで測定された。より多くのATPとより多くの酸化剤は対になっていた。
実用的な読み取りチェックリスト
4つの質問が、共役した結果と脱共役した結果を分ける。
第一に、実際に測定された指標は何か。酸素消費だけではATPを示せない。ATP合成、膜電位、呼吸調節比は、それぞれ酸素電極では見えない情報を1つずつ追加する。メチレンブルー研究の主張を読むためのガイドでは、この測定指標の扱いを詳しく説明している。
第二に、どの基質がミトコンドリアへ供給されたか。スクシニルCoAの結果は、追加呼吸が追加ATPになるかどうかを燃料選択が決定し得ることを示している。
第三に、どの濃度が使われたか。脳ミトコンドリアでのナノモーラーから低マイクロモーラーのメチレンブルーは、酸化剤コストを伴う穏やかなバイオエネルギー改善を示した。肝臓ミトコンドリアでは0.5マイクロモーラー以上で結合が低下し、5マイクロモーラーでは膨張が加わった。濃度は背景情報ではなく、メカニズムの一部である。
第四に、どのモデルで結果が得られたか。単離ミトコンドリアは仕組みを明らかにするが、完全な細胞や組織では輸送、無色型への還元、電子を受け取る競合経路が加わる。濃度とプロトコルがメチレンブルー効果をどのように形作るかを含む実験室投与研究は、チャンバー内の数値と人に関する主張の間をつなぐ橋である。
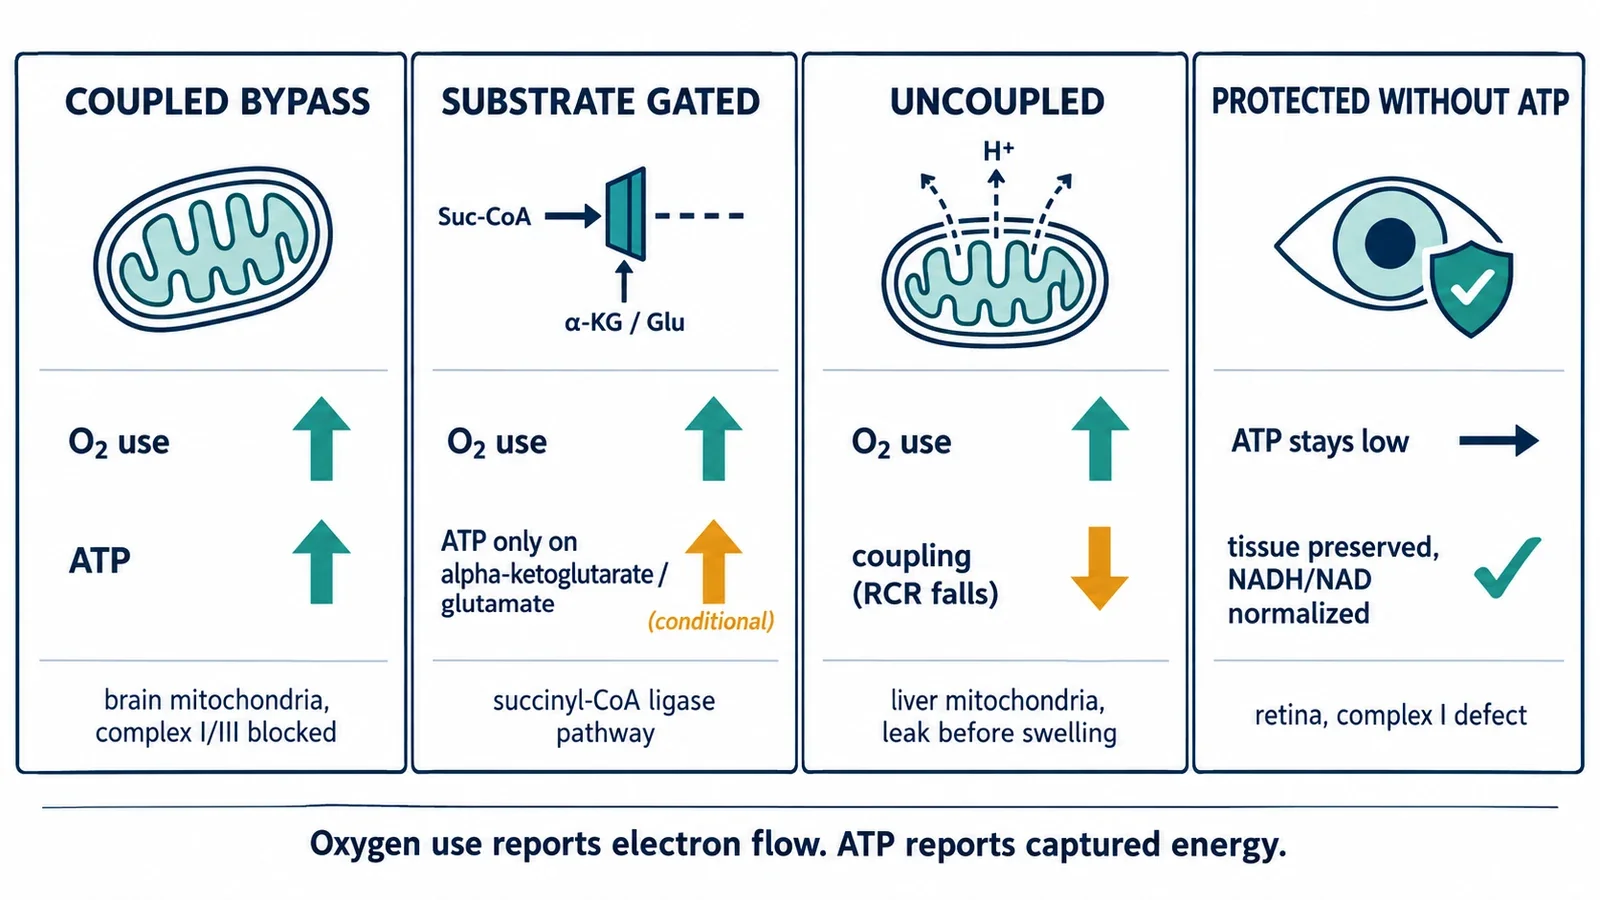
酸素消費は電子の流れを示す。ATPは、その流れがどれだけ捕捉されたかを示す。メチレンブルーはどちらも変化させる可能性があり、上記の実験はそこから生じる4つの組み合わせを示している。両方が上昇する場合、基質が許す場合だけ呼吸が上昇する場合、呼吸が上昇しながら結合が低下する場合、そしてATPが横ばいのまま組織が維持される場合である。酸素電極の数値は解釈の出発点であり、終点ではない。