
記事
メチレンブルー実験における活性酸素種の測定
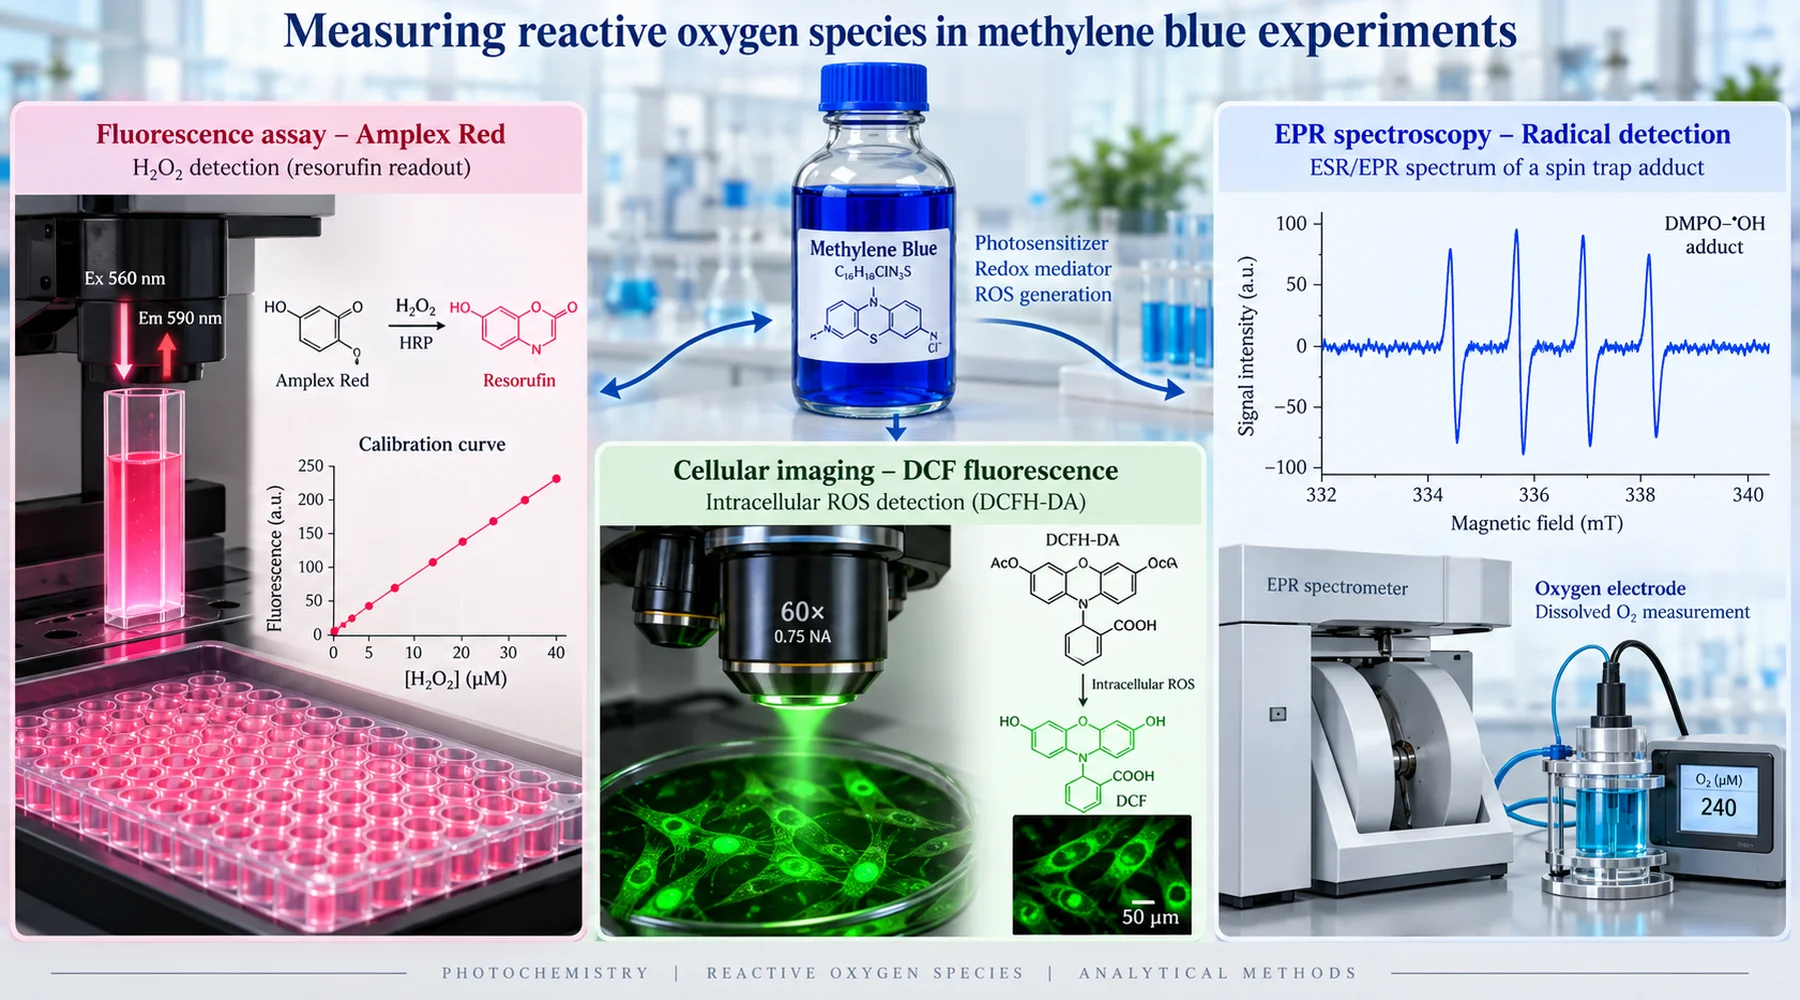
2つの研究室が、それぞれメチレンブルーの抗酸化実験と呼ぶ実験を行います。一方は色素が活性酸素種を抑制すると報告し、もう一方は色素が活性酸素種を生成すると報告します。どちらも明確な用量反応曲線を示します。どちらも誠実に実験しています。違いは不正や能力不足ではありません。2つのグループが異なる条件の光環境下で、異なる問いに答えるプローブを使い、異なるものを測定し、それらの答えを同じ言葉「ROS」で表現したことにあります。
メチレンブルーは、観察しようとしている化学反応そのものに関与するため、正確な測定が難しい分子です。暗所では電子供与体と受容体の間で電子を移動させ、元の状態に戻って再び反応サイクルに入ります。光を受けると光増感剤となり、励起三重項状態に到達します。そこから酸素へエネルギーを渡して一重項酸素を生成したり、電子を移動させてラジカルや過酸化水素を生成したりします。その系に置かれたプローブは、色素そのものによって酸化、還元、退色、または光学的にマスクされる可能性があります。したがって、ROS測定で最初に問うべきことは数値ではありません。そのアッセイが実際に何を検出しているのか、そして色素がアッセイにどのような影響を与えるのかです。
Amplex Red:校正された過酸化水素アッセイ
methylene blue Amplex Red の組み合わせは、適切に設定されている場合、この分野で最も妥当性の高い組み合わせです。化学反応は特異的です。ホースラディッシュペルオキシダーゼは過酸化水素を利用してAmplex基質を酸化し、蛍光生成物であるレゾルフィンを、おおよそ1対1の化学量論で生成します。サンプル中の過酸化物は検出器で蛍光になります。標準的なROSファミリーの他の成分は、この反応を直接駆動しません。
最大の利点はキャリブレーションです。慎重な実験者は、同じバッファー、同じペルオキシダーゼと基質濃度、同じインキュベーション時間、同じ光学設定で既知濃度の過酸化物標準を測定し、その曲線とサンプルを比較します。この手法の基礎となった単離脳ミトコンドリア研究では、著者らはまさにこれを行い、各測定終了時に既知量の過酸化物を添加しました。そして数値は任意の蛍光単位ではなく、タンパク質1mgあたり毎分のピコモル単位の速度として報告されています。これにより、光が単なる測定値ではなく、測定可能な値になります。
その研究から3つの詳細は模倣する価値があります。第一に、著者らは過酸化物を分解するカタラーゼによってシグナルを検証しました。カタラーゼを添加するとメチレンブルーによる蛍光上昇は停止し、シグナルが光学的アーティファクトではなく過酸化物によるものであることが確認されました。第二に、励起光を遮断してサンプルへの光量を通常の8分の1にし、照明の影響を直接調べました。シグナル低下はわずか9%でした。報告された過酸化物の90%以上は測定光に依存しませんでした。第三に、電極を用いて過酸化物除去を別途測定し、色素が生成量を増加させるだけでなく、除去速度も低下させることを示しました。正味の蛍光だけを測定するプローブでは、この2つの効果を区別できません。
このアッセイにも失敗要因があり、メチレンブルーはいくつかに関与します。色素はレゾルフィンが発光する同じ赤色領域を広く吸収するため、高濃度では内部フィルター効果によって自身のシグナルを隠す可能性があります。そのため、標準液にはサンプルと同じ濃度の色素を含める必要があります。Amplex Red自体も光酸化する可能性があり、その生成物レゾルフィンは光レドックスサイクルに入り、スーパーオキシドや過酸化物を生成する場合があります。これは、実験で光増感剤も照明している場合に特に重要です。実用的な対策は、メチレンブルーのサンプルを先に照射し、その後暗所でAmplex試薬を用いてアリコートを測定することです。色素とプローブを同時に照明するべきではありません。最後に、スーパーオキシドディスムターゼは単純にAmplexシグナルを抑制するわけではありません。スーパーオキシドを過酸化物へ変換することで、シグナルを増加させる可能性があります。SOD対照で蛍光が増加した場合、それは失敗ではありません。スーパーオキシドが上流の種であることを示しています。
DCFDA:非特異的酸化指標
methylene blue DCFDA の組み合わせは、多くの混乱の原因です。DCFH-DAは細胞導入用の前駆体です。細胞内エステラーゼがその酢酸基を除去し、非蛍光性のDCFHを残します。そしてDCFHの酸化によって蛍光性DCFが生成されます。これを酸化するものは多岐にわたります。ヒドロキシルラジカル、ペルオキシダーゼおよびヘム中間体、二酸化窒素、次亜塩素酸、ペルオキシナイトライト由来ラジカルなどです。過酸化水素単独では実用的な速度で直接酸化できません。過酸化物依存性の蛍光には通常、鉄、ヘムタンパク質、またはペルオキシダーゼ反応が必要です。
方法論の節で引用されるべき批判は、KalyanaramanらによるDCFHプローブ解析に由来します。この内容は、この理由でDCFDAを除外した脳ミトコンドリア研究 で要約されており、この色素が遅い反応速度、未定義の化学量論、無効なキャリブレーション、ROSではない化合物との反応を示すことが説明されています。また、このプローブは測定対象を増幅します。DCFHの一電子酸化によってDCFラジカルが生成され、それが酸素と反応してスーパーオキシドを作り、さらに過酸化物へ変換されます。読み取り値は、報告している化学反応自体を部分的に作り出しています。
これらはDCFDAが無用であることを意味しません。これは同定ではなくスクリーニングであるということです。DCF蛍光の増加は、酸化剤依存性のプローブ酸化が増えたことを意味します。過酸化水素が増えたことを意味せず、まして総ROSが増えたことを意味しません。単一のプローブで測定できる量ではありません。1マイクロモル以上のDCFH酸化に依存した初期のメチレンブルー研究では酸化促進効果が報告されました。一方、同時期の別の系では過酸化物誘導細胞死に対する保護が報告されました。同じ色素でも異なるレドックス環境では両方が成立し得ます。DCF結果だけでは、どの酸化種がシグナルを担ったのか判断できません。初期の脳ミトコンドリア研究が重要なのは、このスクリーニングを校正済み過酸化物測定に置き換え、直接的な負荷を測定した点です。その結果、試験したすべての基質および呼吸状態で、わずか100ナノモル濃度の色素でも過酸化物放出が数倍増加することが確認されました。
DCFDAには、メチレンブルー特有の別の落とし穴があります。色素は強く着色され、レドックス活性を持つため、蛍光を退色させたり、発光を消光したり、細胞内ROSとは独立してプローブ化学を酸化したりできます。細胞を含まない色素+プローブ対照は単なる装飾ではありません。それは色素がプローブと相互作用するかを確認する実験です。
スピントラッピングと酸素取り込み:正体とフラックス
蛍光プローブが「酸化可能なものが現れた」と報告するのに対し、スピントラップを用いた電子スピン共鳴は、それが何であったかに近い情報を提供します。古典的なメチレンブルー光化学研究では、ESRを用いて色素、アスコルビン酸、光によるアスコルビン酸ラジカルを検出 し、その後、酸素取り込み実験で過酸化物生成を、スピントラッピング実験で鉄触媒によるヒドロキシルラジカル生成を示しました。それぞれの手法は他の手法では答えられない問いに答えました。ESRはラジカルの正体を示し、酸素取り込みは蛍光プローブに依存しない反応フラックスを示し、両者の組み合わせによって、同じ照射系で一重項酸素経路とラジカル経路の両方が働いていることが示されました。
この1984年の結果は、現在でも警告として読めます。光と還元剤が存在すると、色素は過酸化物を生成し、鉄が存在すると系は最も反応性の高い種であるヒドロキシルラジカルを生成しました。著者らはこれを眼内のアスコルビン酸と関連付け、安易な眼科用途について疑問を呈しました。現代の読者は条件に注意すべきです。光+還元剤+鉄です。いずれか1つを除けば、この経路は弱まるか消失します。
酸素電極が価値を持つ理由は別にあります。クラーク型電極は正味の酸素消費を測定し、色素によるレドックス反応が分子状酸素を消費していることを示し、蛍光アーティファクトでは再現できない反応速度を提供します。ただし生成物は同定できません。過酸化物、スーパーオキシド、水、一重項酸素の崩壊はいずれも酸素を消費します。正体を伴わないフラックスは、フラックスを伴わない正体測定と同様に不完全です。そのため、優れた研究では電極を校正済み過酸化物アッセイまたはトラップ法と組み合わせます。
抗酸化結果が矛盾する理由
3つの読み取り方法を並べると、メチレンブルー文献に見られる矛盾は、方法の違いと3つの生物学的事実によって解消されます。
第一に、色素は電子シャトルであると同時に過酸化物源でもあります。酸素がスーパーオキシドになる可能性のある呼吸部位から電子を迂回させることで、あるROSを低下させる一方、還元型が酸素を直接還元して過酸化物を増加させる可能性があります。ミトコンドリアのレドックス化学とバイパス作用 に直面する研究室では、プローブ依存の結果を予想すべきです。同じキュベット内でスーパーオキシド感受性の読み取り値は低下し、過酸化物の読み取り値は上昇する可能性があります。
第二に、低濃度の過酸化物は単なる損傷ではなくシグナルです。初期研究に続くマウス脳ミトコンドリア研究では、わずか50ナノモル濃度の色素による過酸化物生成が、治療範囲でミトコンドリアDNA損傷を伴わないこと が示され、前処理によってロテノン誘導損傷への保護が確認されました。治療範囲を大きく超える100マイクロモル濃度でのみ、色素は選択的DNA断片を損傷しました。また、20マイクロモル濃度の色素と赤色光では、一重項酸素が生成され、試験したすべての断片が損傷しました。提案されている機構はホルミシスです。軽度の過酸化物生成がNrf2関連抗酸化防御とミトコンドリア生合成を誘導し、短期的な酸化促進シグナルが長期的な抗酸化結果に先行するというものです。1時間後に測定したアッセイと1日後に測定したアッセイが異なる結果になるのは、その間に生物学的状態が変化したためです。
第三に、光はどの分子が存在するかを決定します。照明によって色素はAzure Bなどの関連生成物へ脱