
Članak
Metilensko modrilo i dušikov monoksid: NOS, cGMP i vaskularna signalizacija
Pitanje zvuči jednostavno: inhibira li metilensko modrilo dušikov monoksid? U laboratoriju se odgovor dijeli na četiri zasebna pitanja, a svako zahtijeva drukčiju eksperimentalnu provjeru. Njihovo je miješanje glavni razlog zbog kojeg tekstovi o metilenskom modrilu i dušikovu monoksidu zvuče samouvjereno, ali ostaju neodređeni.
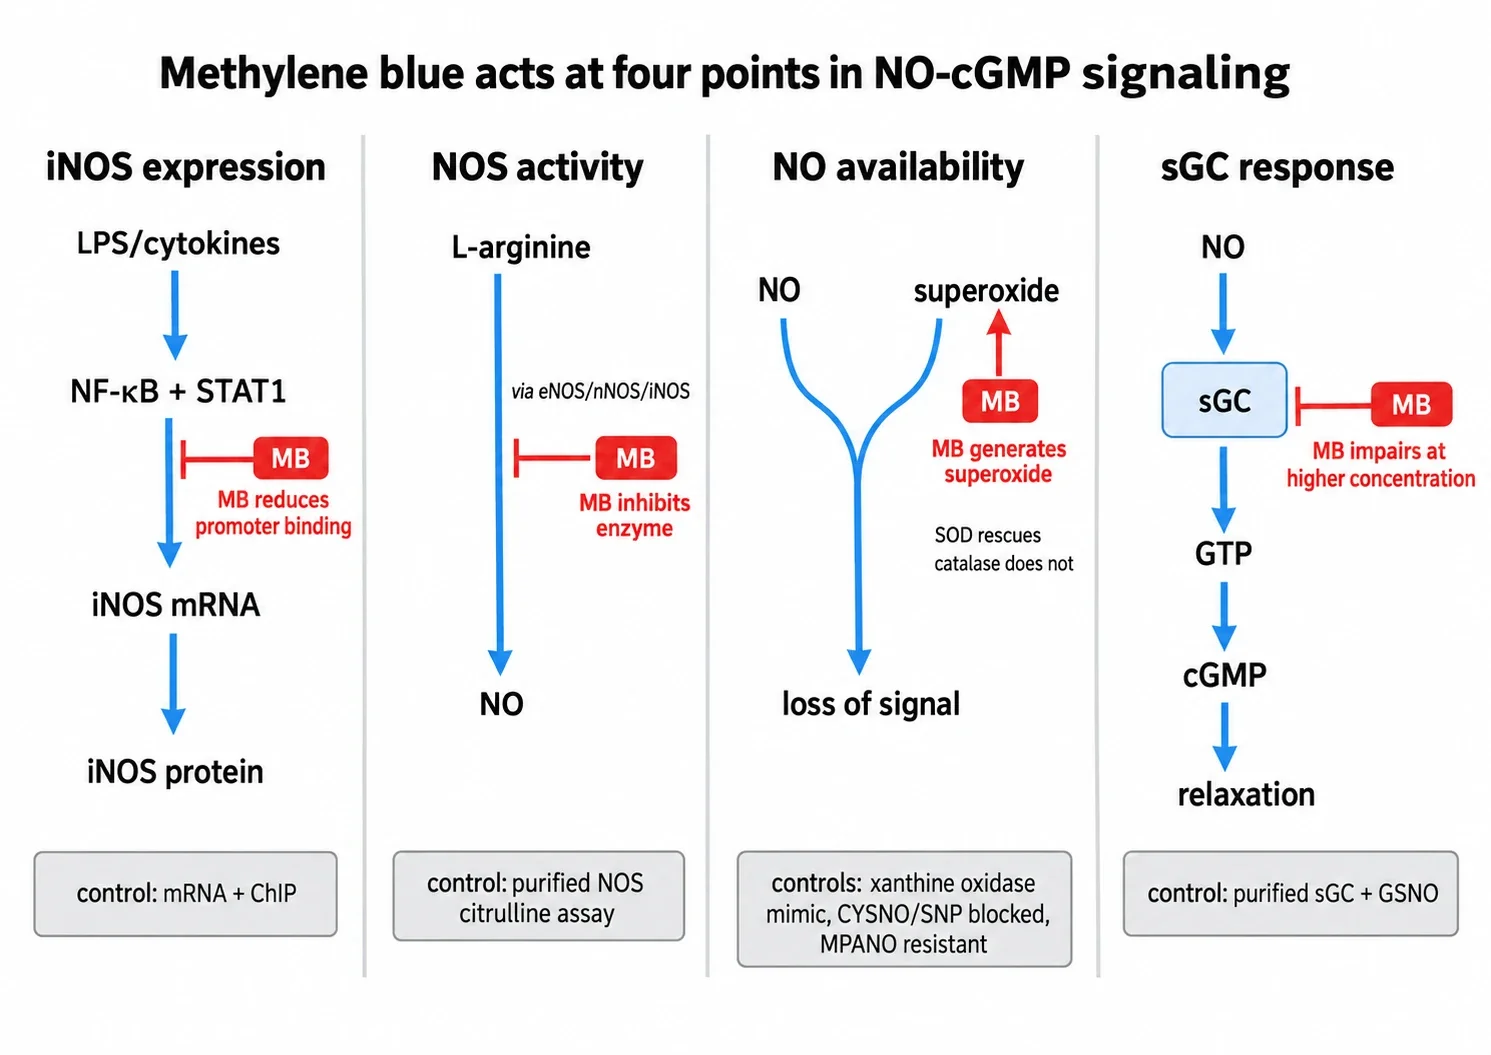
Zamislite signal dušikova monoksida kao lanac s četiri karike. Gen se transkribira kako bi nastala sintaza dušikova monoksida. Enzim pretvara arginin u dušikov monoksid. Plin difundira do svoje mete prije nego što reagira s nečim drugim. Topljiva gvanilat-ciklaza prepoznaje ga i stvara ciklički GMP. Objavljeni su učinci metilenskog modrila na svaku kariku, no dokazi dolaze iz različitih eksperimentalnih pripravaka, pri različitim koncentracijama i s različitim izoformama. Rezultat na jednoj karici ne dokazuje djelovanje na drugoj.
Kanonski lanac, jednostavno objašnjen
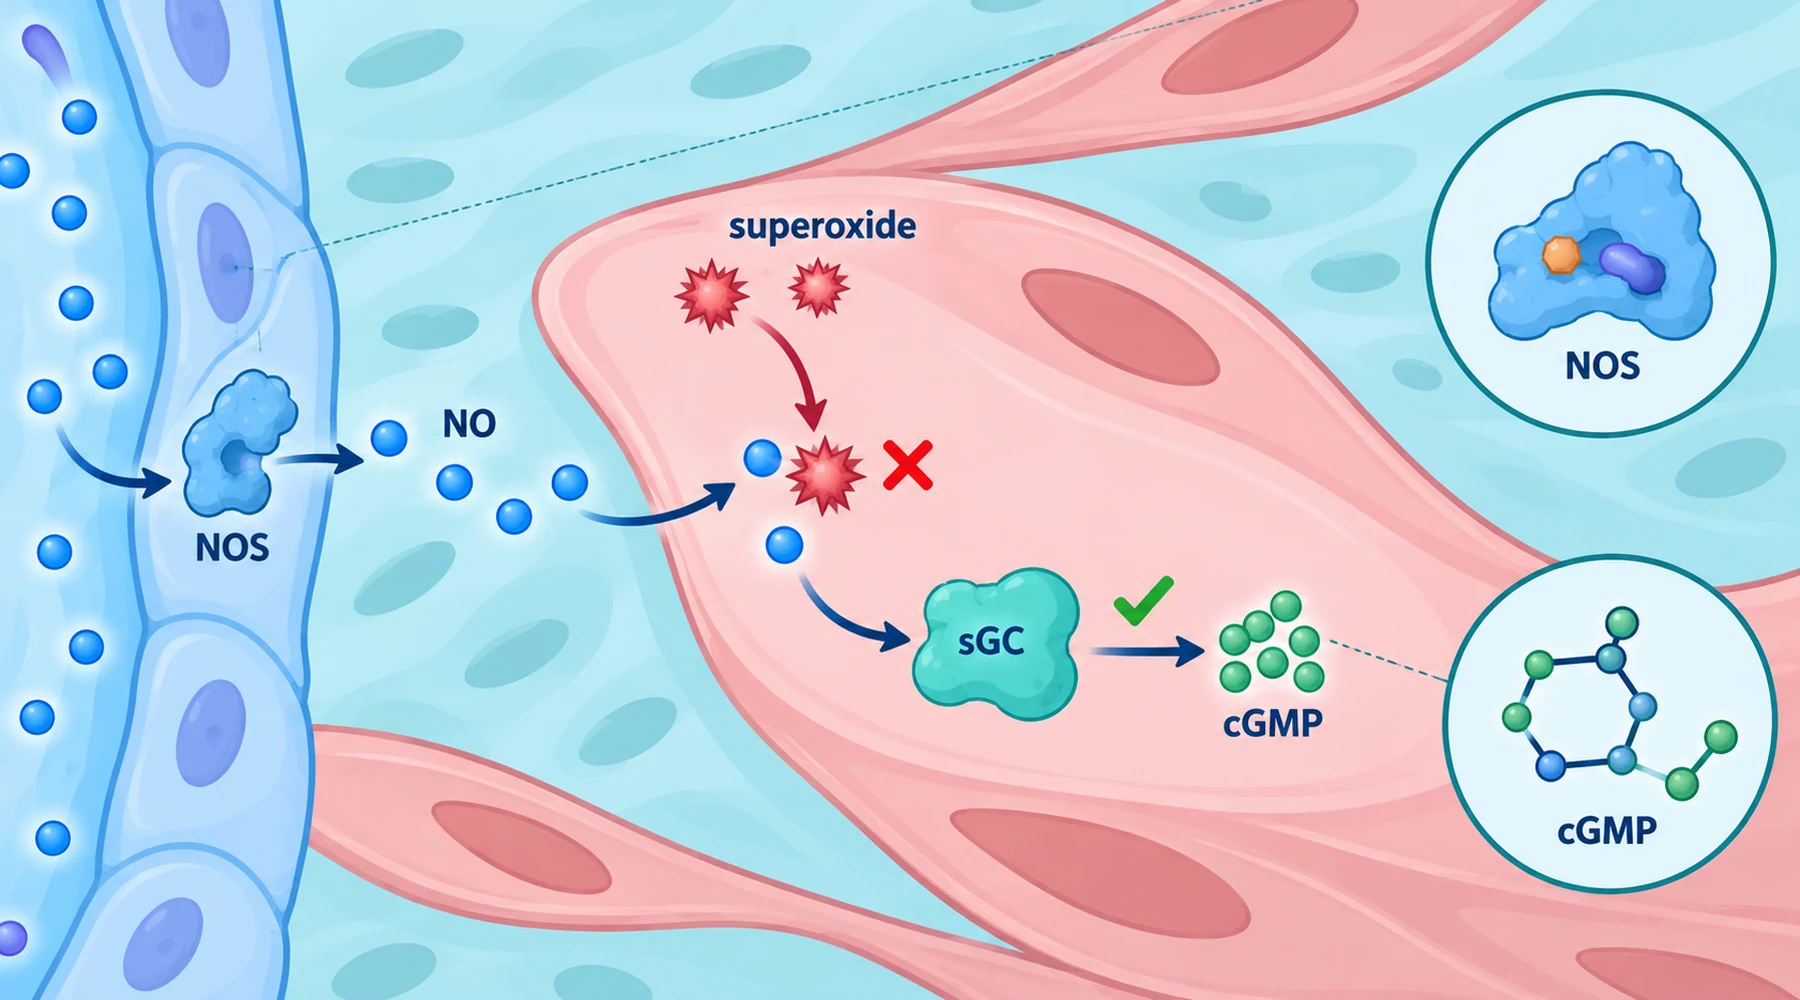
U stijenci krvne žile uobičajeni slijed izgleda ovako. Podražaj djeluje na endotelnu stanicu. Endotelna sintaza dušikova monoksida, nazvana eNOS ili NOS3, stvara mali puls dušikova monoksida. Plin difundira u susjednu glatku mišićnu stanicu, veže se na hem s reduciranim željezom u topljivoj gvanilat-ciklazi i ubrzava pretvorbu GTP-a u ciklički GMP. Ciklički GMP aktivira protein-kinazu G, mijenja se regulacija kalcija i mišić se opušta.
Postoji i drugi lanac koji valja razmatrati zasebno. Tijekom infekcije ili izloženosti citokinima stanice transkribiraju drugi enzim, inducibilnu sintazu dušikova monoksida ili iNOS, nazvanu i NOS2. Ona stvara veće i dugotrajnije tokove dušikova monoksida nego eNOS. Treća izoforma, neuronski NOS ili nNOS, pripada još jednom kontekstu. Kad rad spominje sintazu dušikova monoksida bez navođenja izoforme, zastanite i provjerite koja je mjerena. Pregled načina na koji metilensko modrilo prenosi elektrone naglašava isto za redoks-mete općenito: prijenosnik sam po sebi ne djeluje, a partner na svakom kraju određuje ishod.
Izmjerena količina cikličkog GMP-a također je zbirni pokazatelj, a ne izravna analiza enzima. Njegova razina odražava sintezu djelovanjem ciklaze umanjenu za razgradnju djelovanjem fosfodiesteraza, osobito PDE5 u glatkim mišićima krvnih žila. Pad cikličkog GMP-a stoga znači da je manje signala stiglo do detektora. Sam po sebi ne otkriva koja je karika zakazala.
Karika 1: stvara se manje enzima iNOS
U mišjim makrofagima stimuliranima bakterijskim lipopolisaharidom, interferonom gama ili objema tvarima metilensko modrilo spriječilo je očekivani porast proteina iNOS i snažno potisnulo glasničku RNA za iNOS u pokusima transkripcije u makrofagima. Važno je ono što se nije promijenilo. Razgradnja inhibitora I kapa B alfa, fosforilacija NF kapa B i STAT1 te premještanje tih čimbenika u jezgru ostali su uglavnom nepromijenjeni. Smanjilo se njihovo vezanje za DNA, što je potvrđeno imunoprecipitacijom kromatina koja je pokazala smanjenu zauzetost promotora iNOS-a.
To je učinak na regulaciju gena koji prethodi promjeni količine enzima, a ne akutna blokada postojećeg enzima. Pripada upalnoj signalizaciji, u kojoj se transkripcijski čimbenici moraju vezati za promotor prije nego što se protein pojavi. Ne govori ništa izravno o konstitutivnom eNOS-u u krvnoj žili u mirovanju i tako ga treba opisivati.
Karika 2: postojeći enzim NOS radi sporije
Istraživanje na štakorima ispitivalo je drukčiju razinu. Mužjaci štakora pri svijesti primili su lipopolisaharid intravenski, a zatim tri sata poslije fiziološku otopinu ili metilensko modrilo u količini od 3 mg po kg intravenski. Aktivnost sintaze dušikova monoksida u medijalnom bazalnom hipotalamusu mjerena je pretvorbom obilježenog arginina u citrulin u istraživanju aktivnosti NOS-a u hipotalamusu. Sam stres uz fiziološku otopinu inducirao je određenu aktivnost neovisnu o kalciju, a lipopolisaharid ju je povećao na približno deset puta veću razinu od kontrolne. Metilensko modrilo uklonilo je obje inducirane komponente. Konstitutivna aktivnost ovisna o kalciju nije se promijenila u tom tkivu pri toj dozi i u toj vremenskoj točki.
Čitajte taj rezultat točno kako je napisan: potisnuta je izmjerena aktivnost tipa iNOS u tim uvjetima. To nije mjerenje ekspresije gena niti dokaz trajne selektivnosti za iNOS u odnosu na eNOS ili nNOS. Rad s pročišćenim enzimima dodatno naglašava potrebu za oprezom. U izravnim analizama pročišćene sintaze dušikova monoksida metilensko modrilo potpuno je blokiralo stvaranje citrulina pri koncentraciji od 30 mikromolara, uz koncentraciju za polovičnu inhibiciju od približno 5.3 mikromolara bez superoksid-dismutaze i 9.2 mikromolara uz nju, kako je navedeno u usporedbi pročišćenog NOS-a i gvanilat-ciklaze. Zasebno istraživanje pročišćenog nNOS-a ukazalo je na oksidaciju hema vezanog za enzim. Praktična je pouka da izravna inhibicija NOS-a postoji u izoliranim sustavima, ali rezultat iz hipotalamusa ne može se proširiti u opću tvrdnju da metilensko modrilo svugdje ostavlja sve konstitutivne oblike NOS-a netaknutima.
Karika 3: dušikov monoksid gubi se prije dolaska
Najjasniji dokaz da pad cikličkog GMP-a može objasniti nešto drugo osim blokade enzima dolazi iz uzgojenih glatkih mišićnih stanica plućne arterije kunića. Pokus je potpuno zaobišao endogeni NOS izravnim dodavanjem donora dušikova monoksida, a zatim je provjereno potiskuje li metilensko modrilo i dalje odgovor cikličkog GMP-a u istraživanju superoksida u glatkim mišićima krvnih žila.
Ispitana su tri donora u rasponu od 1 do 100 mikromolara: S-nitrozo-L-cistein, natrijev nitroprusid i stabilni deaminirani analog nazvan MPANO. Svi su povećali ciklički GMP približno 1.5 do 12 puta. Metilensko modrilo pri koncentraciji od 10 mikromolara inhibiralo je odgovor na prva dva za 51 do 100 posto, a odgovor na MPANO ostavilo je nepromijenjenim. Kad bi metilensko modrilo jednostavno blokiralo katalitičko mjesto ciklaze, takvu bi selektivnost prema donorima bilo teško objasniti jer sva tri djeluju preko istog nizvodnog enzima.
Tri su kontrolna pokusa zatim povezala mehanizam sa superoksidom. Prvo, stvaranje izvanstaničnog superoksida ksantinom uz ksantin-oksidazu ponovilo je isti obrazac: odgovor na CYSNO i nitroprusid bio je blokiran, a na MPANO očuvan. Drugo, metilensko modrilo izazvalo je stvaranje superoksida u glatkim mišićnim stanicama ovisno o dozi i vremenu, mjereno redukcijom citokroma c. Treće, superoksid-dismutaza potpuno je spriječila inhibiciju, dok katalaza nije, što u tom eksperimentalnom pripravku upućuje na superoksid, a ne na vodikov peroksid, kao neposredno odgovornu kemijsku vrstu.
Vrijedi opisati inačicu pokusa u zajedničkoj kulturi jer ona prostorno smješta učinak. Endotelne stanice na pokrovnim stakalcima kratko su uzgajane zajedno s glatkim mišićnim stanicama, pa je bazalno oslobođeni endotelni čimbenik povećao ciklički GMP u glatkim mišićima tri do osam puta. Prethodna obrada bilo kojeg odjeljka metilenskim modrilom smanjila je taj signal, a superoksid-dismutaza djelomično je poništila učinak prethodne obrade endotela. Drugim riječima, metilensko modrilo uopće ne mora djelovati unutar glatke mišićne stanice koja služi kao detektor. Može smanjiti signal uklanjanjem glasnika tijekom njegova prijenosa. Vodič za čitanje istraživanja metilenskog modrila to razmatra kao opće pravilo: navedite odjeljak u kojem je provedena intervencija prije nego što navedete molekularnu metu.
Nazvati to inhibicijom NOS-a bilo bi pogrešno. Donorima za djelovanje nije bio potreban korak sa sintazom, a signal je ipak pao.
Karika 4: sam detektor slabije odgovara
Izravni učinci na topljivu gvanilat-ciklazu postoje, ali koncentracije su važne. U gore navedenoj usporedbi pročišćenih enzima za polovičnu inhibiciju ciklaze stimulirane dušikovim monoksidom bilo je potrebno približno 60 mikromolara metilenskog modrila, nasuprot polovičnoj inhibiciji NOS-a pri približno 5 do 9 mikromolara, a čak je i 1 milimolar izazvao samo djelomičnu maksimalnu blokadu. To je približno šesterostruka do jedanaesterostruka razlika. Stanični pokus pri niskoj mikromolarnoj koncentraciji koji smanjuje ciklički GMP stoga se ne može opisati kao selektivna inhibicija ciklaze samo na temelju izmjerene vrijednosti cikličkog GMP-a.
Kasnije redoks-istraživanje dodalo je drugo upozorenje: metilensko modrilo deaktiviralo je ciklazu aktiviranu dušikovim monoksidom mehanizmom različitim od jednostavne oksidacije željeza u hemu zrakom. Dakle, funkcija detektora može biti narušena, ali kemijski mehanizam nije razjašnjen, a razlika u koncentracijama znači da pri izloženosti niskim mikromolarnim koncentracijama prvo treba isključiti učinke superoksida i NOS-a. Ovdje pripada i kontrola fosfodiesteraza. Ako razgradnja nije izmjerena ili blokirana, smanjeno nakupljanje cikličkog GMP-a može biti posljedica manje sinteze, brže razgradnje ili obojega.
Zašto se to ne može svesti na jednu tvrdnju o krvnom tlaku
Svaka je karika utvrđena u drukčijem sustavu. Transkripcija u makrofagima nije aktivnost enzima u hipotalamusu. Aktivnost u hipotalamusu nakon lipopolisaharida nije endotelni tonus u mirovanju. Bazalno oslobođeni endotelni čimbenik u zajedničkoj kulturi nije vazodilatacija stimulirana agonistom. Uzgojene stanice plućne arterije pri koncentraciji metilenskog modrila od 10 mikromolara nisu ljudski krvotok. Svođenje svega na tvrdnju poput one da metilensko modrilo povećava krvni tlak blokiranjem dušikova monoksida odbacuje upravo one razlike koje su kontrolni pokusi osmišljeni sačuvati.
Tri provjere održavaju prikaz točnim. Prvo, navedite izoformu: eNOS za vaskularni tonus u mirovanju, iNOS za inducirani upalni tok, nNOS za neuronske kontekste i neke kontekste s pročišćenim enzimima. Drugo, navedite kako je signal dušikova monoksida doveden: endogenom sintezom, bazalnim oslobađanjem iz endotela ili određenim donorom poput CYSNO-a, nitroprusida ili MPANO-a, jer je stabilni donor bio otporan na metilensko modrilo, a nestabilni nisu. Treće, navedite koncentraciju i poništavanje učinka: poništavanje učinka superoksid-dismutazom upućuje na superoksid, izostanak učinka katalaze govori protiv uloge vodikova peroksida u tom eksperimentalnom pripravku, oponašanje učinka ksantin-oksidazom pokazuje da je superoksid dovoljan, a analize pročišćenih enzima razdvajaju izravne učinke na katalizu od gubitaka tijekom prijenosa.
Sažeti zaključak glasi ovako. Metilensko modrilo bolje je promatrati kao tvar koja remeti signalizaciju od dušikova monoksida do cikličkog GMP-a na više mjesta nego kao selektivni blokator ciklaze. Ovisno o eksperimentalnom pripravku i koncentraciji, može smanjiti vezanje transkripcijskih čimbenika za iNOS, izravno inhibirati enzime NOS, smanjiti dostupnost dušikova monoksida stvaranjem superoksida i narušiti funkciju ciklaze aktivirane dušikovim monoksidom. Uloga signalizacije cikličkim GMP-om u vaskularnim istraživanjima i usporedba donora dušikova monoksida koji se upotrebljavaju u staničnim testovima detaljnije obrađuju po jednu od tih grana, a metode za razdvajanje redoks-učinaka od učinaka na enzime objašnjavaju zašto se superoksid-dismutaza uz katalazu i kontrolu sa stabilnim donorom tako često pojavljuje u toj literaturi.
Niska vrijednost cikličkog GMP-a nakon metilenskog modrila pokazuje da je lanac prekinut. Samo kontrolni pokusi otkrivaju koja je karika puknula.