
Članak
Kad metilensko modrilo ometa pokus kojim se mjeri
Jedan laboratorij uzgaja embrije zebrice u metilenskom modrilu pri standardnoj koncentraciji za uzgoj, a zatim mjeri metabolizam na dva načina. Prvoga dana analizator Seahorse bilježi povećanu potrošnju kisika. Četvrtoga i petoga dana ploča s testom Alamar Blue pokazuje smanjenu potrošnju energije. Isto bojilo, ista linija riba, suprotni zaključci. Zatim dolazi nenametljiva kontrola: jažice koje sadrže metilensko modrilo i reagens Alamar Blue, ali nijednu ribu, također daju slabiji signal od samog reagensa. Dio rezultata odražavao je biološke promjene. Dio je nastao zato što je bojilo ocjenjivalo vlastiti ispit. Ta podjela, dokumentirana u istraživanju metilenskog modrila u zebricama tijekom razvoja, objavljenom 2025. u časopisu Communications Biology, tipičan je obrazac interferencije metilenskog modrila u testovima i razlog zašto redoks-aktivna bojila zahtijevaju kontrole koje obični ispitivani spojevi ne trebaju.
Što test s rezazurinom zapravo pokazuje
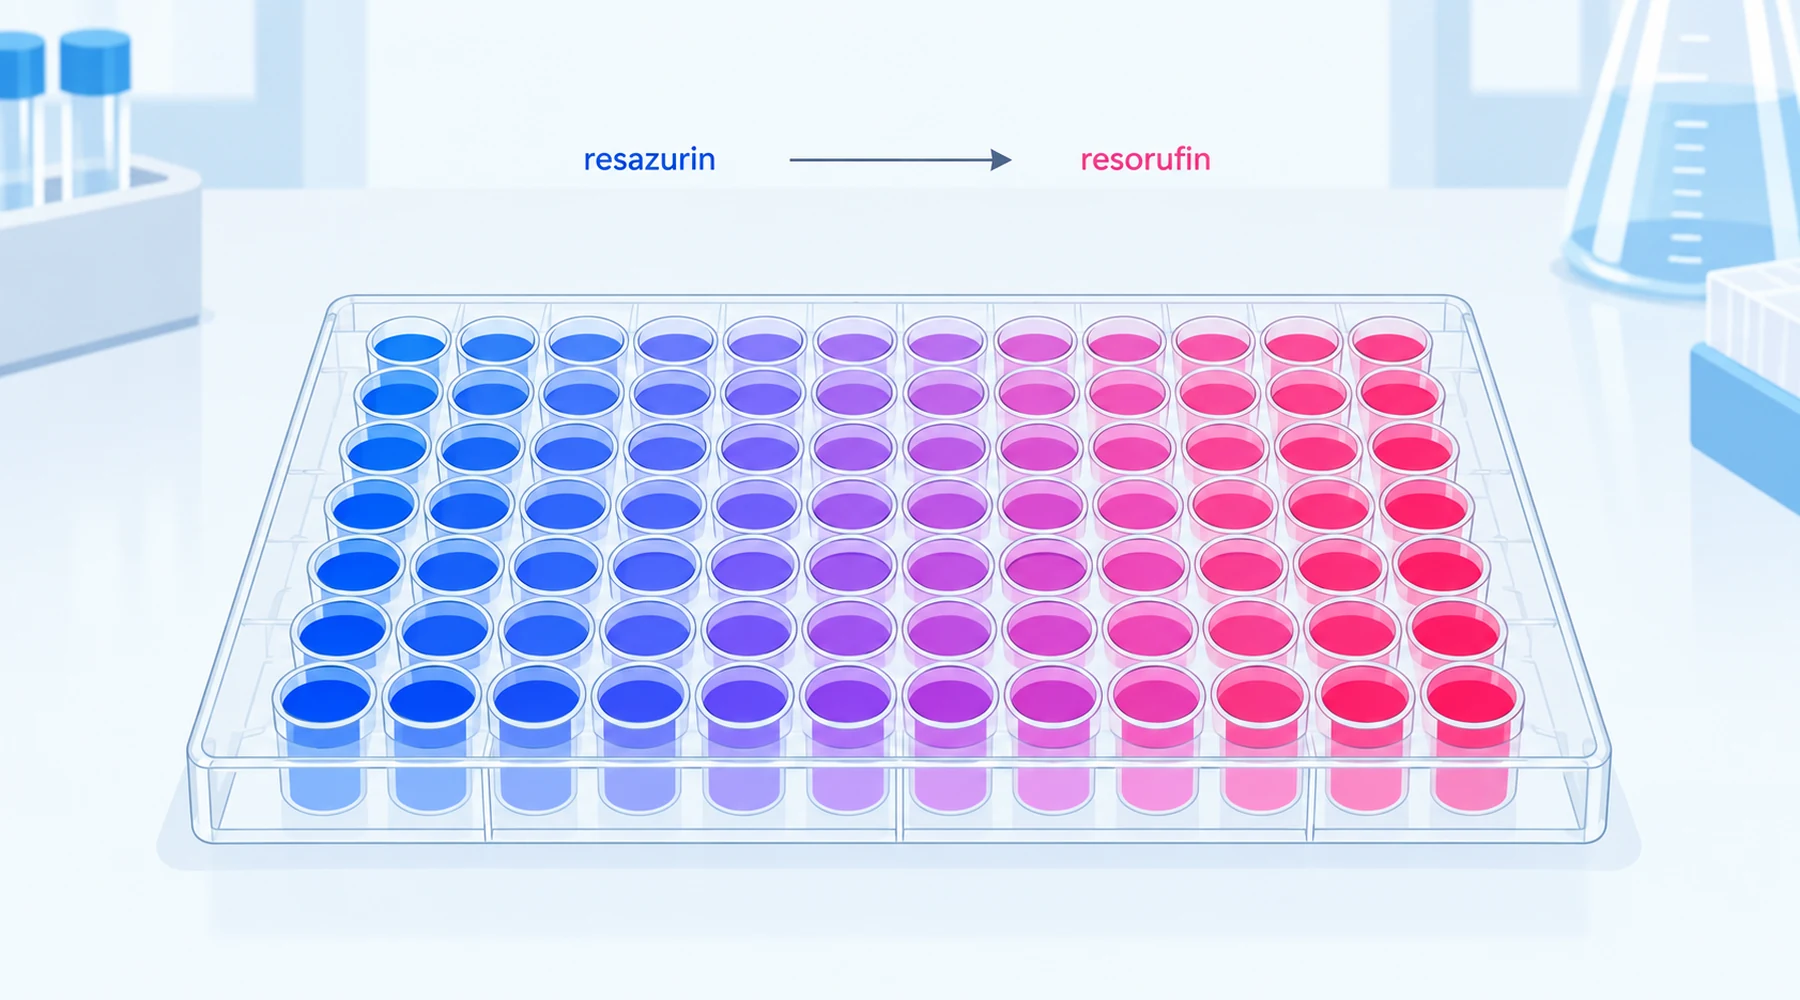
Alamar Blue trgovački je naziv za otopinu rezazurina, pa interferencija metilenskog modrila s testom Alamar Blue i interferencija metilenskog modrila s testom rezazurina opisuju isti problem. Oksidirani rezazurin plav je i gotovo ne fluorescira. Metabolički aktivne stanice reduciraju ga u rezorufin, koji je ružičast i snažno fluorescira pri valnim duljinama pobude oko 560 nm i emisije oko 590 nm, uz uporabne raspone pobude od približno 530 do 570 nm i emisije od 580 do 610 nm prema proizvođačevu protokolu za mikrotitarske ploče. Ako se redukcija nastavi, rezorufin se pretvara u dihidrorezorufin, koji slabo fluorescira, pa previše stanica u jažici ili preduga inkubacija savijaju kalibracijsku krivulju prema dolje u njezinu gornjem dijelu.
Elektroni uglavnom dolaze iz NADH i NADPH posredovanjem staničnih reduktaza i dijaforaza u citosolu, mikrosomima i mitohondrijima. Zato očitanje predstavlja ukupni redukcijski kapacitet, a ne broj živih stanica ni mitohondrijsko mjerenje. Viši signal može značiti više stanica, veći protok redukcijskih ekvivalenata po stanici ili oboje. Spoj koji preusmjerava NADH mijenja signal bez usmrćivanja ijedne stanice. Imajte tu rečenicu na umu jer je preusmjeravanje NADH upravo ono što metilensko modrilo radi.
Dva puta interferencije, jedan sniženi signal
Metilensko modrilo iskrivljuje očitanje rezazurina putem dvaju neovisnih mehanizama, a svaki od njih samostalno smanjuje prividnu fluorescenciju.
Put 1 je optički. Metilensko modrilo snažno apsorbira u crvenom dijelu spektra, s monomernom vrpcom oko 660 do 665 nm i dimernim ramenom oko 607 do 610 nm čiji se rep proteže prema emisiji rezorufina oko 590 nm. Bojilo na putu svjetlosti apsorbira dio pobudne svjetlosti i ponovno apsorbira dio emitirane fluorescencije. Taj učinak unutarnjeg filtra slabi signal iz jažice čak i kada je proizvodnja rezorufina nepromijenjena. Spektar se mijenja i sa stanjem bojila: faktorska analiza spektara metilenskog modrila u vodi i otopinama ciklodekstrina razlučuje monomer, dimer i kompleks domaćin–gost kao tri vrste s različitim koeficijentima ekstinkcije od 500 do 700 nm, pa se veličina optičke pogreške mijenja s koncentracijom, agregacijom i vezanjem. U pokusu razlikujte jednostavno optičko slabljenje od molekularnog gašenja fluorescencije testom iskorištenja dodanog standarda opisanim u nastavku jer se načini ispravljanja tih učinaka razlikuju.
Put 2 je redoks-natjecanje. Oksidirano metilensko modrilo prihvaća elektrone iz NAD(P)H i stvara bezbojno leukometilensko modrilo, koje molekularni kisik ponovno oksidira u plavi oblik, uz nastanak reduciranih kisikovih produkata, uključujući vodikov peroksid. Svaki krug tog ciklusa troši redukcijske ekvivalente koji bi inače reducirali rezazurin, a ujedno troši kisik i usput stvara peroksid. Sniženi signal testa Alamar Blue stoga može značiti da su elektroni prošli kroz ciklus metilenskog modrila umjesto da su sudjelovali u nastanku rezorufina. Na ploči se to očitava kao smanjen metabolizam bez obzira na to što su stanice doista radile. Ista kemija objašnjava obrnutu zamku kod instrumenata za mjerenje kisika: ponovno oksidiranje reduciranog bojila kisikom uzrokuje kemijsku potrošnju kisika bez prisutnosti biološkog sustava. Zato slijepe probe s bojilom trebaju biti uključene i u respirometriju, kako za mitohondrijski slučaj objašnjava usporedba očitanja kisika, ATP-a i membranskog potencijala.
Promijenjen signal i promijenjena biologija mogu istodobno biti stvarni
Istraživanje na zebricama vrijedno je upravo zato što ne prihvaća jednostavno objašnjenje „ili jedno ili drugo”. Biološke promjene bile su stvarne: bazalna potrošnja kisika porasla je u embrijima starima 1 dan pri objema koncentracijama za uzgoj, disanje povezano s ATP-om poraslo je pri nižoj koncentraciji, membranski potencijal mjeren sondom JC-10 porastao je drugoga dana, a razine transkripata mitohondrijskih kompleksa smanjile su se prvoga i četvrtoga dana. Artefakt je također bio stvaran: ribe isprane tri puta prije koraka s testom Alamar Blue i dalje su imale vidljivo plavo obojenje u području glave, usta i njušne regije, a jažice bez stanica, s bojilom i reagensom, same su izgubile malu, ali značajnu količinu fluorescencije. Smanjenja signala testa Alamar Blue u organizmima četvrtoga i petoga dana bila su veća od učinka u jažicama bez stanica, pa su autori rezultat protumačili kao stvarnu metaboličku promjenu promatranu kroz blago iskrivljenu leću. To je ispravan način razmišljanja. Spoj koji sudjeluje u redoks-ciklusu i ujedno je plavo bojilo koje apsorbira svjetlost obično će istodobno poremetiti proučavani put i kemiju indikatora. Zadaća je kontrola odrediti veličinu svakog doprinosa, a ne proglasiti jedan od njih izmišljenim. Srodna pouka dolazi iz rada o vezanju ciklodekstrina: kada je molekula domaćina vezala i izdvojila bojilo, obojenje i aktivacija unosa glukoze oslabjeli su zajedno. To je upućivalo na to da metabolički učinak zahtijeva izravnu interakciju s bojilom, a ne raspršeni redoks-šum. Povezivanje fizikalnog očitanja bojila s funkcionalnim očitanjem upravo je postupak koji odvaja mehanizam od artefakta, a vodič za tumačenje metaboličkih tvrdnji temeljenih na bojilima dodatno razvija tu naviku.
Kontrole koje ih razdvajaju
Provedite ih prije tumačenja bilo kojeg rezultata metilenskog modrila dobivenog na ploči s rezazurinom. Koncentracije, medij, vrijeme inkubacije i osvjetljenje moraju točno odgovarati staničnom pokusu jer svaki prethodno opisani put ovisi o njima.
| # | Kontrola | Što otkriva | Kriterij prihvatljivosti | Ako kriterij nije zadovoljen |
|---|---|---|---|---|
| 1 | Medij s bojilom, bez reagensa i stanica | Pozadinski signal bojila pri valnim duljinama testa | Pozadinski signal malen u odnosu na stanični signal | Oduzmite slijepe probe za svaku koncentraciju, nikad jednu zajedničku slijepu probu |
| 2 | Medij s reagensom, bez bojila i stanica | Spontanu redukciju reagensa | Niska, stabilna osnovna razina tijekom inkubacije | Skratite inkubaciju, promijenite medij ili prihvatite višu donju granicu signala |
| 3 | Medij s bojilom i reagensom, bez stanica | Izravnu kemijsku reakciju bojila i reagensa | Jednako kao kontrola 2 unutar razine šuma | Navedite odstupanje, nemojte ga pripisivati stanicama |
| 4 | Dodatak rezorufina u jažice s nosačem naspram jažica s bojilom | Optičko slabljenje ili gašenje fluorescencije | Jednako iskorištenje dodatka u obje matrice | Kvantificirajte gubitak za svaku dozu bojila i ispravite ga ili prijeđite na drugo očitanje |
| 5 | Usporedba zaostalog bojila bez stanica nakon ispiranja i bez ispiranja | Preostalo bojilo nakon vaših koraka ispiranja | Ispiranje uklanja učinak u odsutnosti stanica | Bojilo uneseno u stanice ostaje, pa kontrole 3 i 4 i dalje vrijede |
Kontrole 3 i 4 par su koji većina radova preskače, a većina radova o metilenskom modrilu treba. Kontrola 3 otkriva kemijske učinke, kontrola 4 optičke, a zajedno određuju granice artefakta prije iznošenja bilo kakve tvrdnje o biološkim promjenama.
Ortogonalna očitanja, svako sa svojim ograničenjima
Nijedan pojedinačni dodatni test ne potvrđuje prvi. Svako ortogonalno očitanje izbjegava jedan put interferencije, ali ostaje izloženo drugome, pa odaberite kombinaciju čije se slijepe točke ne preklapaju. Matrica za odabir testova za redoks-aktivne spojeve objašnjava logiku kombiniranja, a vodič za sonde membranskog potencijala detaljno opisuje ograničenja fluorescencije.
Mjerenje potrošnje kisika analizatorom Seahorse prati elektrone do kisika umjesto do rezorufina, čime potpuno zaobilazi kemiju indikatora. No bojilo također kemijski troši kisik, pa su obvezne slijepe probe s bojilom bez mitohondrija u potpunom mediju. Testovi ATP-a s luciferazom koriste bioluminiscenciju umjesto fluorescencije rezorufina te tako izbjegavaju i optičko preklapanje i natjecanje za reduktaze, ali uz cijenu da pokazuju ravnotežu zalihe ATP-a, a ne brzinu njegove sinteze. Sonde membranskog potencijala poput TMRM ili JC-10 odgovaraju na pitanje održava li se gradijent naboja, no fluoresciraju u istom vidljivom rasponu u kojem bojilo apsorbira. Preostalo plavo obojenje zato otežava i njihovo tumačenje, pa zahtijevaju slijepe probe samo s bojilom pri svakoj dozi bojila. Mjerenja transkripata podjedinica respiracijskih kompleksa potpuno izbjegavaju optičke učinke i obuhvaćaju promjene tijekom sati, čime nadopunjuju očitanja s ploče na vremenskoj skali minuta.
Minimalni vjerodostojni skup podataka za metaboličku tvrdnju o metilenskom modrilu stoga uključuje: rezultat testa s rezazurinom uz kontrole 1 do 4, jednu završnu mjeru koja ne koristi rezazurin i temelji se na drukčijem fizikalnom načelu te izričito tumačenje odražava li promjena broj stanica, protok redukcijskih ekvivalenata po stanici ili oboje. Sve manje od toga čitatelju onemogućuje razlikovanje slabijeg metabolizma od slabijeg svjetlosnog signala iz jažice.
Radni list za kontrolu interferencije
Kopirajte ovaj radni list u laboratorijski dnevnik za svaki pokus koji kombinira bojilo s redoks-indikatorom. To je izvorni radni materijal ovog članka: ispunite jedan redak za svaku koncentraciju bojila.
A. Putovi signala. Za svaku koncentraciju zabilježite: očekivanu prevlast monomera ili dimera (niske mikromolarne koncentracije naspram desetaka mikromola po litri i više), apsorbanciju konačnog sadržaja jažice pri 590 nm u jažici bez stanica te postotak iskorištenja dodanog rezorufina. Ako iskorištenje padne ispod približno 90 posto, sve vrijednosti fluorescencije pri toj dozi smatrajte optički umanjenima, a ne biološki točnima.
B. Provjera kemije. Zabilježite fluorescenciju bojila s reagensom bez stanica kao postotak osnovne razine samog reagensa pri svakom vremenu očitanja. Ako odstupanje raste s vremenom, bojilo tijekom testa reagira s indikatorskim sustavom, pa će očitanja samo na završnoj točki dovesti do pogrešnog zaključka. Razmotrite kinetička očitanja ili drugi indikator.
C. Unakrsna provjera bioloških promjena. Navedite ortogonalno očitanje odabrano za ovaj pokus, njegovu slijepu probu s bojilom i predviđeni ishod ako je rezultat rezazurinskog testa stvaran. Stvarno smanjenje metaboličke aktivnosti trebalo bi pomaknuti neovisnu završnu mjeru u usklađenom smjeru. Ako se ortogonalna završna mjera ne slaže, zasad ne vjerujte nijednom rezultatu i preoblikujte pokus umjesto da računate njihov prosjek.
D. Rečenica zaključka. Napišite jednu rečenicu u obliku: pri navedenoj dozi i stadiju signal rezazurina promijenio se za navedeni iznos, od čega navedeni iznos čini artefakt u odsutnosti stanica, a ortogonalna završna mjera (slaže se ili ne slaže). Ako je bilo koja stavka prazna, pokus nije dovršen.
Metilensko modrilo ostaje korisna metabolička sonda, a rad na zebricama pokazuje stvarne mitohondrijske učinke pri dozama koje mnoge ustanove svakodnevno izlijevaju u odvod. Bojilo jednostavno zahtijeva mjerenje instrumentima na koje ne može utjecati. Osigurajte mu jažice samo s bojilom, test iskorištenja dodanog standarda i jedno očitanje utemeljeno na drukčijim fizikalnim načelima, pa interferencija prestaje biti zamka i postaje veličina izražena brojem.