
Artikkeli
Metyleenisininen ja hormeesi: miksi annos–vastekäyrät voivat vaihtaa suuntaa
Yksi rotta saa 4 milligrammaa metyleenisinistä kilogrammaa kohti opittuaan tunnistamaan esineen, ja seuraavana päivänä se muistaa. Toinen rotta saa 50 ja jaksaa tuskin pyörittää juoksupyöräänsä. Molekyyli on sama. Vaikutuksen suunta ei ole. Jokainen, joka on lukenut enemmän kuin muutaman metyleenisinistä käsittelevän tutkimuksen, on kohdannut tämän suunnanmuutoksen. Sillä on nimi: hormeesi, kaksivaiheinen vaste, jossa pieni ja suuri altistus muuttavat samaa vastemuuttujaa vastakkaisiin suuntiin.
Nimestä on hyötyä vain, jos tietää, mitä se lupaa ja mitä ei. Tässä artikkelissa käydään läpi neljä julkaistua metyleenisiniaineistoa, joilla kullakin on oma vastemuuttujansa, pitoisuusalueensa ja koeasetelmansa, ja osoitetaan, miksi väriaineen kemia tekee tällaisista suunnanmuutoksista uskottavia. Lopuksi esitetään varoitus, jota aineisto edellyttää: yhdessä kokeessa huippunsa saavuttava käyrä kuvaa kyseistä koetta, eikä se ole menetelmä henkilökohtaisen annoksen valitsemiseen.
Ilmiöllä on nimi, mutta nimen merkitys on kapeampi kuin miltä se kuulostaa
Southam ja Ehrlich ottivat hormeesin käsitteen käyttöön vuonna 1943, ja Calabrese ja Baldwin antoivat sille sen nykyisen määrällisen määritelmän: sopeutuva kaksivaiheinen vaste, joka syntyy suoraan tai kompensaation kautta homeostaasin häiriinnyttyä. Huomaa, mitä määritelmästä puuttuu. Siinä ei esiinny sanaa hyödyllinen. Hormeesi kertoo, että käyrä vaihtaa suuntaa, ei muuta.
Näkyvä muoto riippuu siitä, mikä vastemuuttuja on pystyakselilla. Kun vastemuuttuja kuvaa myönteistä toimintoa, kuten entsyymiaktiivisuutta, hapenkulutusta tai muistisuoritusta, pienen annoksen aiheuttama stimulaatio ja sitä seuraava suuren annoksen aiheuttama esto piirtävät käänteisen U:n. Kun vastemuuttuja kuvaa jotakin kielteistä, kuten sairauden ilmaantuvuutta, pienen annoksen aiheuttama väheneminen ja sitä seuraava suuren annoksen aiheuttama lisääntyminen piirtävät J:n tai U:n. Sama yhteys, eri pystyakseli. Useimmissa metyleenisinistä koskevissa tutkimuksissa mitataan myönteisiä toimintoja, joten tässä artikkelissa puhutaan käänteisistä U-käyristä muistaen, että kirjaimen muoto riippuu kuvaajan esitystavasta.
Vuoden 2008 katsaus, johon koottiin metyleenisinisen hormeettisia vasteita, konkretisoi mittakaavan. Käyttäytymistä, fysiologiaa ja biokemiaa koskevissa tutkimuksissa stimulaatioalueen vasteet saavuttavat noin 130–160 prosenttia vertailutasosta, keskimäärin lähes 140 prosenttia. Annoksen kasvaessa ne laskevat takaisin vertailutasolle ja sitten sen alapuolelle. Tämä vaihteluväli on yhteenveto monista kokeista, ei molekyylin ominaisuus. Jokaisella alla esitetyllä käyrällä on oma huippunsa omissa yksiköissään.
Miksi juuri tämän molekyylin vaikutuksen voisi odottaa vaihtavan suuntaa
Metyleenisininen ei ole pelkkä elektroninluovuttaja. Se on palautuvasti toimiva elektronien kuljettaja. Hapettunut sininen muoto vastaanottaa elektroneja ja muuttuu värittömäksi pelkistyneeksi muodoksi, joka voi luovuttaa elektronit eteenpäin. Näiden käyrien taustalla oleva elektronien välitys kuvataan selostuksessa siitä, miten metyleenisininen siirtää elektroneja. Tässä juuri tuo kuljetustoiminta on kaiken ytimessä.
Pienissä pitoisuuksissa tämä kierto tarjoaa soluhengitykselle vaihtoehtoisen reitin. Pelkistynyt väriaine voi hapettua sytokromioksidaasissa, elektroninsiirtoketjun viimeisessä entsyymissä, jolloin sen katalyyttinen toiminta, hapenkulutus ja hengityskapasiteetti lisääntyvät. Suuremmissa pitoisuuksissa sama elektroneja vastaanottava kemia alkaa kilpailla normaalin ketjun kanssa sen auttamisen sijaan: se ohjaa elektroneja pois niiden tavanomaiselta reitiltä, kuluttaa happea suoraan ja tuottaa reaktiivisia happilajeja hyödyllisen energiantuotannon sijaan. Pieni määrä katalyyttistä kuljettajaa lisää elektronivirtaa; liian suuri kilpaileva vastaanottaja vähentää sitä. Kemia tekee suunnanmuutoksesta uskottavan, mutta ei takaa mitään siitä, missä yksittäinen vastemuuttuja saavuttaa huippunsa.
Riippumatonta näyttöä pitoisuusriippuvuudesta saadaan soluista, joissa ei ole lainkaan mitokondrioita. Vuoden 1976 punasolukokeissa pieni, 1 mikromolaarin pitoisuus stimuloi heksoosimonofosfaattireittiä tavalla, joka riippui voimakkaasti oksihemoglobiinista. Sata kertaa suuremmassa, 0.1 millimolaarin pitoisuudessa oksihemoglobiinin läsnäololla oli tuskin merkitystä, ja vetyperoksidia muodostui kaikkien kolmen käytetyn määritysmenetelmän perusteella. Sama väriaine, kaksi mekanismia, joita erottaa pitoisuus. Punasoluissa ei tapahdu soluhengitystä, joten kyse ei ole mitokondriaalisesta käyrästä. Se kuitenkin osoittaa, että väriaineen hapetus-pelkistyskemian luonne muuttuu pitoisuuden kasvaessa, mikä on juuri se edellytys, jota mitokondrioita koskeva selitys vaatii.
Neljä käyrää, neljä koeasetelmaa
Alla oleva kuva esittää neljä aineistoa uudelleen piirrettynä rinnakkain. Jokaisessa osakuvassa säilytetään sen omat akselit ja olosuhteet, sillä niiden yhdistäminen samalle asteikolle olisi ensimmäinen valhe, jonka tämä artikkeli voisi kertoa. Kuva on kaavamainen; tarkat arvot ja olosuhteet esitetään tekstissä.
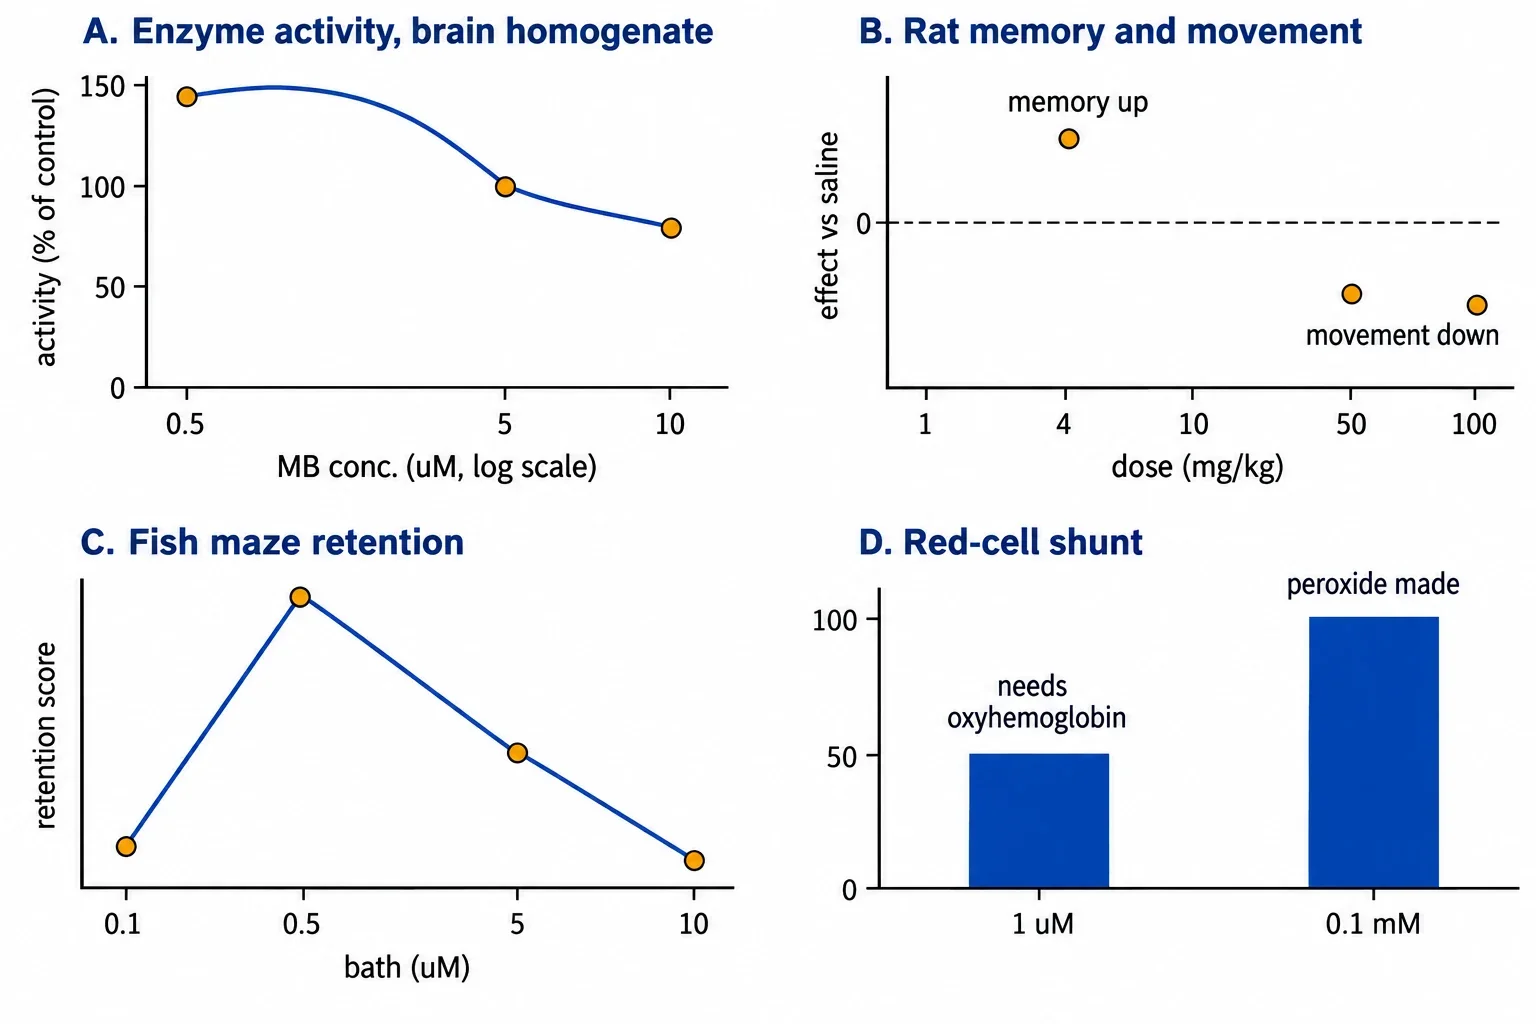
Osakuva A: sytokromioksidaasi rotan aivohomogenaatissa. Selkein mitokondriaalinen käyrä saadaan toisen käden lähteestä, katsauksessa esitetystä rotan aivohomogenaattia koskevasta aineistosta: aktiivisuus on noin 138 prosenttia vertailutasosta 0.5 mikromolaarin pitoisuudessa, palaa vertailutasolle noin 5 mikromolaarin pitoisuudessa ja laskee lähtötason alapuolelle noin 10 mikromolaarin pitoisuudessa. Kirjoittajat esittävät, että tuolloin väriaine vie elektroneja pois ketjun normaaleilta komplekseilta. Homogenaatti, mikromolaarinen pitoisuus, spektrofotometrinen määritys. Tuo virke sisältää koko asiayhteyden, eikä käyrä merkitse mitään sen ulkopuolella.
Osakuva B: rottien muisti ja juoksupyörässä juokseminen. Rottien muistia koskevassa tutkimuksessa yksittäisten oppimisen jälkeisten injektioiden vaikutuksia testattiin 24 tuntia myöhemmin. Annoksilla 1–10 milligrammaa kilogrammaa kohti liikkuminen ja syöminen eivät eronneet keittosuolaliuosta saaneista eläimistä, kun taas annokset 50–100 milligrammaa kilogrammaa kohti vähensivät juoksupyörässä juoksemista jyrkästi (mediaani 35 verrattuna 279 kierrokseen). Suurin annos aiheutti karvojen pystyyn nousemista, koordinoimattomia liikkeitä ja yhden kuoleman. Annos 4 milligrammaa kilogrammaa kohti paransi tottumista ja esineiden tunnistamista: käsitellyt rotat viettivät lähes 10 sekuntia enemmän aikaa uuden esineen parissa. Aivojen hapenkulutus lisääntyi sekä homogenaatissa, joka altistettiin pelkistyneen väriaineen pienille mikromolaarisille pitoisuuksille, että aivoissa, jotka otettiin tutkittaviksi 24 tuntia sen jälkeen, kun eläville rotille oli annettu 1 milligramma kilogrammaa kohti. Huomaa ero: käyttäytymistä tutkittiin oppimisen jälkeisillä systeemisillä annoksilla, hapenkulutusta homogenaatin pitoisuuksilla ja yhdellä elävälle eläimelle annetulla annoksella. Kyse on kahdesta kokeesta, ei yhdestä käyrästä.
Osakuva C: seeprakalojen T-labyrintti. Seeprakalatutkimuksessa oppimistehtävän suorittaneet kalat altistettiin oppimisen jälkeen 12 tunnin ajan kylvyissä, joiden nimellispitoisuudet olivat 0.1, 0.5, 5.0 tai 10.0 mikromolaaria. Vertailuna käytettiin sinistä elintarvikeväriä. Ryhmä 0.5 mikromolaaria suoriutui parhaiten, ryhmä 5.0 vastasi vertailuryhmää ja ryhmä 10.0 suoriutui heikommin kuin pienemmän annoksen ryhmät. Osakuvaan liittyy kaksi varausta. Kylvyn mikromolaarinen pitoisuus ei ole sama kuin veren tai aivojen mikromolaarinen pitoisuus; akvaarioveden ja kudoksen välillä vaikuttavat jakautuminen ja kertyminen. Lisäksi tilastollinen näyttö on heikompaa kuin käyrän muoto antaa ymmärtää: suuren annoksen ryhmä erosi pienemmän annoksen ryhmistä, mutta muita merkitseviä ryhmäeroja ei raportoitu. Käyrä on todellinen mutta karkea.
Osakuva D: punasolujen heksoosimonofosfaattireitti. Metz ja hänen kollegansa vertasivat 1 mikromolaarin ja 0.1 millimolaarin pitoisuuksia ihmisen punasoluissa ilmassa, hiilimonoksidissa sekä kaasuseoksessa, joka tuotti lähes täydellisen karboksihemoglobiinimuodostuksen fysiologisessa hapen osapaineessa. Pienen pitoisuuden stimulaatio romahti ilman oksihemoglobiinia; suuren pitoisuuden stimulaatio tuskin muuttui. Peroksidia ilmeni vain suurella pitoisuudella. Tämä osakuva kuuluu muiden rinnalle kemian näkökulmasta, ei neljänneksi pisteeksi johonkin yleiskäyrään: ei mitokondrioita, satakertainen pitoisuusero, muunnellut kaasuseokset.
Miksi huiput eivät vastaa toisiaan, eikä niiden pidäkään
Neljän aineiston huiput ovat homogenaatissa 0.5 mikromolaaria, oppimisen jälkeen injektiona annettuna 4 milligrammaa kilogrammaa kohti, akvaariovedessä 0.5 mikromolaaria sekä punasoluissa pienen ja suuren pitoisuuden pari, jonka pitoisuusero on satakertainen. Minkä tahansa kahden käsitteleminen samana lukuna on kategoriavirhe. Jokaisella vastemuuttujalla on oma käyränsä: muistin optimaalisen tason ei tarvitse vastata oksidaasiaktiivisuuden, hapenkulutuksen, liikkumisen tai peroksidintuotannon optimaalista tasoa. Jokainen pitoisuusyksikkö merkitsee eri asiaa: homogenaatin mikromolaarinen pitoisuus, kylvyn nimellinen mikromolaarinen pitoisuus, systeeminen annos milligrammoina kilogrammaa kohti sekä plasman, aivojen ja mitokondrioiden pitoisuudet ovat eri suureita. Metyleenisinisen taipumus kertyä mitokondrioihin ja aivoihin pitää ne erillään. Jokainen malli tuo mukanaan oman farmakokinetiikkansa: laji, antoreitti ja ajoitus ratkaisevat, mikä kudos kohtaa kuinka paljon väriainetta ja kuinka pitkäksi aikaa.
Tässä myös annoksen ja antoreitin merkitys metyleenisinisen turvallisuudelle on olennainen. Näissä tutkimuksissa havaitut suurten annosten vaikutukset — liikkumisen väheneminen, koordinoimattomat liikkeet, yksi kuollut rotta ja peroksidin muodostuminen — ovat toksisuuden merkkejä omissa koeasetelmissaan, eivät turvallisuusmarginaaleja kenellekään muulle. Jokaisen, jota houkuttelee muuntaa rotalle annettu 4 milligrammaa kilogrammaa kohti ihmisen annosteluohjelmaksi, tulisi ensin lukea, miten eläintutkimusten havainnot suhteutuvat ihmisistä saatuun näyttöön: pelkkä milligrammoihin kilogrammaa kohti perustuva muunnos lajien välillä on riittämätön.
Virhe, jota on vältettävä
Käänteinen U houkuttelee, koska se näyttää annostelun säätimeltä, johon on merkitty ihanteellinen kohta. Sellainen se ei ole. Hormeesi kuvaa, mitä yhdelle vastemuuttujalle tapahtui yhdessä koeasetelmassa. Kun kokoat neljä tällaista kuvausta, saat neljä huippua neljässä yksikköjärjestelmässä — siis kaikkea muuta kuin annostelun säätimen. Näiden käyrien rehellinen käyttö on vertailevaa ja varoittavaa: odota vaikutusten vaihtavan suuntaa pitoisuuden mukana, odota jokaisen vastemuuttujan vaihtavan suuntaa omassa kohdassaan ja suhtaudu epäillen väitteisiin, joissa yhden kokeen huippua lainataan perustelemaan annosta eri lajille, antoreitille, kudokselle tai käyttötarkoitukselle. Kokeellisten ilmiöiden ja henkilökohtaisten annostelupäätösten välinen ero on tämän koko artikkelin ydin. Se todetaan vielä kerran, jotta se ei jää huomaamatta.
Miten lukea seuraavaa annos–vastetutkimusta
Neljä kysymystä sopii lähes jokaiseen vastaan tulevaan metyleenisinikäyrään. Mikä vastemuuttuja on pystyakselilla, ja piirtäisikö sen suunnanmuutos U:n vai J:n? Mitä pitoisuutta vaaka-akseli todellisuudessa kuvaa: kylvyn nimellispitoisuutta, homogenaatin tai plasman pitoisuutta, arvioitua aivopitoisuutta vai annettua systeemistä annosta? Millainen malli ja ajoitus tuottivat käyrän: homogenaatti, soluviljelmä valossa tai pimeässä, oppimistehtävän suorittaneet eläimet, joille annos annettiin ennen oppimista tai sen jälkeen — ja milloin testaus tehtiin? Entä mikä oli vertailu: keittosuolaliuos, sininen elintarvikeväri vai kantaja-aine, ja tukevatko tutkimuksen tilastolliset analyysit jokaista parittaista vertailua koskevaa väitettä vai vain kokonaismuotoa? Tutkimus, joka vastaa kaikkiin neljään kysymykseen, on aikasi arvoinen. Tutkimus, joka ilmoittaa huipun ilman näitä tietoja, on antanut sinulle luvun ilman osoitetta.