
Artikkel
Metüleensinine DNA ja RNA värvimiseks: geelid ja membraanirakendused
Üliõpilane teeb agaroosgeelil elektroforeesi, värvib geeli metüleensinisega ega näe midagi seal, kus ta ootas eredat vööti. Kõrval töökohal värvib järeldoktor sama sinise pudeli sisuga Northern-bloti membraani ja saab kolme minutiga selged ribosomaalsed vöödid. Üliõpilane järeldab, et geelikatse ebaõnnestus. See ei ebaõnnestunud. Need olid kaks eri ülesannet ning sama värvaine annab neile vastuse erineva tundlikkuse, erineva tausta ja erinevate edasise töö reeglitega.
DNA ja RNA värvimine metüleensinisega põhineb samal keemial, kuid teenib eri eesmärke. Geelis näitab värvaine, kui palju nukleiinhapet paikneb poorses maatriksis. Membraanil näitab see, kas ülekanne õnnestus ja kas radadele kanti ühtlane kogus proovi. Kui see erinevus on selge, muutuvad arusaadavaks ka protokollid, tuvastuspiirid ja ühilduvuse piirangud.
Lühivastus
Metüleensinine on tasapinnaline katioonne värvaine, mis seondub nukleiinhapetega mittekovalentselt ja pöörduvalt: seondumises osalevad elektrostaatiline tõmme fosfaatrühmade poole, interkalatsioon aluspaaride vahele ja seondumine väikese vaoga. Just pöörduvus ongi oluline. Vööte saab värvida, nähtavas valguses vaadelda ja dokumenteerida ning seejärel värvaine eemaldada või proovi puhastada kloonimiseks, hübridisatsiooniks või uue sondiga analüüsimiseks.
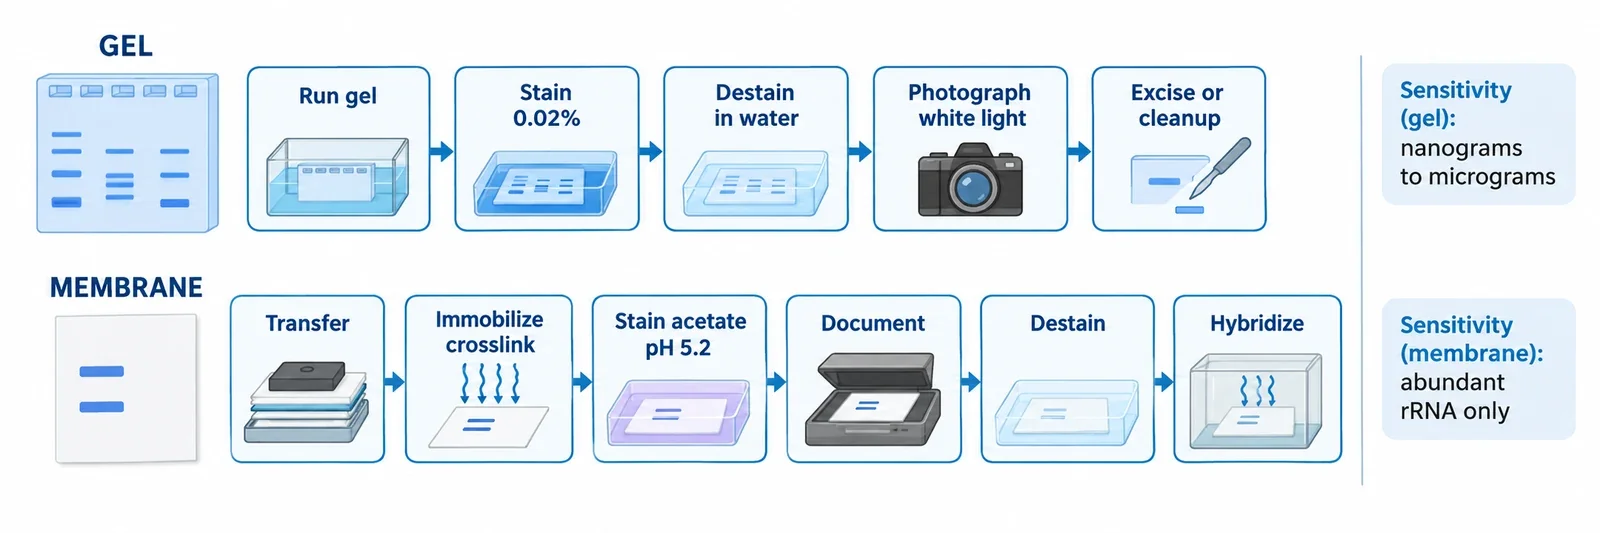
Kaheahelalise DNA värvimiseks agaroosgeelis metüleensinisega kasutatakse standardse kiirprotokolli järgi 0.02 protsenti w/v (200 mikrogrammi mL kohta) vesilahust: ligikaudu 15 minutit värvimist ja ligikaudu 15 minutit värvaine eemaldamist veega, mille järel vaadeldakse geeli valge valgusega valguskastil. Membraanide puhul kasutatakse klassikalises Northern-bloti protokollis 0.02 kuni 0.04 protsenti värvainet naatriumatsetaadilahuses, mille pH on ligikaudu 5.2; pärast ülekannet ja immobiliseerimist värvitakse mitu minutit, loputatakse veega ning eemaldatakse värvaine enne hübridisatsiooni täielikult. Tundlikkus on tagasihoidlik: heades tingimustes kümned kuni sajad nanogrammid geelivöödi kohta, konservatiivsed juhendid annavad piiriks 0.5 kuni 1 mikrogrammi. See on suurusjärkude võrra rohkem kui etiidiumbromiidi ja SYBR-värvide puhul. Membraanidel ei ole üksiku transkripti jaoks mõistlikku ühtset tuvastuspiiri, sest värvimine näitab peamiselt rohket ribosomaalset RNA-d ja pealekantud materjali koguhulka. Ära asenda kummaski protokollis värvainet jaemüügis pakutava toidulisandilahusega. Valideeritud meetodid eeldavad analüütilise puhtusega värvainet, täpselt määratletud puhvreid ja RNA puhul RNaasivaba käsitsemist.
Kuidas seondumine toimib ja millal see eksitab
Kasulikul mudelil on kolm osa. Esiteks tõmbub positiivse laenguga tsüklisüsteem negatiivse laenguga fosfaatselgroo poole. Spektroskoopilised uuringud näitavad, et väikese soolasisalduse korral domineerib elektrostaatiline komponent, samal ajal kui modelleerimine ja molekulaardünaamika käsitlevad kaheahelalise DNA puhul stabiilsete seondumisviisidena ka interkalatsiooni ja väikese vaoga seondumist, nagu võtab kokku metüleensinise DNA-ga seondumise spektroskoopiline uuring. Teiseks esineb teatav GC-eelistus: modelleerimine eelistab CpG- ja GpC-samme ning katsed näitavad eelistatud seondumist GC-rikaste dupleksidega, nagu kirjeldatakse metüleensinise interkalatsioonieelistuste uuringus, kuid värvaine seondub ka AT-dupleksidega. Tavapärane värvimine ei ole järjestusspetsiifiline. Kolmandaks seonduvad üheahelaline DNA ja RNA peamiselt elektrostaatiliste vastasmõjude ning ligipääsetavate aluste ja dupleksipiirkondadega virnastumise kaudu, mistõttu värvumise tugevus sõltub pikkusest, järjestusest ja sekundaarstruktuurist.
Sellest tuleneb kaks tagajärge. Kuna seondumine on mittekovalentne, pestakse värvaine välja. Polüakrüülamiidgeeli vöödid tuhmuvad kiiresti, kui neid sihipäraselt ei fikseerita; spetsiaalne püsiva fikseerimise variant ongi olemas seetõttu, et tavaline värvimine on ajutine, nagu kirjeldavad Soto ja Draper PAGE-geelide puhul. Kuna värvaine on fotosensibilisaator, võib värvitud DNA pikaajaline tugev valgustamine hapniku juuresolekul oksüdeerida guaniini ja lõpuks tekitada ahelates üksikahelalisi katkestusi. Seda mehhanismi käsitleb metüleensinise sensibiliseeritud guaniini oksüdatsiooni uuring. Lühiajaline vaatlemine valges valguses väldib klassikaliste etiidiumbromiidiga töövoogude tuntud UV-kahjustust ning see on preparatiivsel eraldamisel tõeline eelis. Nähtav valgus on leebem, mitte kahjutu. Kui DNA-d hakatakse kloonima, hoia valgustusaeg lühike. Selle ettevaatusabinõu laiema fotokeemilise tausta kohta vaata metüleensinise fotokeemia kaht rada. Redokspaari ja laenguolekute kohta, mis selgitavad, miks oksüdeeritud vorm seondub ja redutseeritud vorm mitte, vaata metüleensinise struktuuri ja omaduste keemiat.
Esimene ülesanne: värvimine geelides
Geeli värvimine vastab ühele küsimusele: kas selles vöödis on piisavalt nukleiinhapet, et seda palja silmaga näha. Kõige paremini iseloomustatud juhtum on kaheahelaline DNA agaroosis. Florese ja kolleegide algne metüleensinisega geeli värvimise meetod valideeris 0.02-protsendilise kiirprotokolli 1-protsendilisel agaroosgeelil ning näitas, et DNA-d sai seejärel edukalt eraldada ja kloonida. Sama tarnija protokoll on esitatud IBI Scientificu metüleensinise tootelehel, kus 0.04-protsendiline membraaniprotokoll ja geeli kiirprotokoll on kõrvuti.
Praktiline töövoog:
- Tee geelil elektroforees tavapärasel viisil. Värvi pärast elektroforeesi, mitte selle ajal, välja arvatud juhul, kui muudetud meetodi puhul on ülekanne või lahutusvõime valideeritud.
- Sukelda geel 0.02 protsenti w/v metüleensinise lahusesse destilleeritud vees ja loksuta õrnalt ligikaudu 15 minutit.
- Eemalda värvaine mitme veevahetusega, kokku ligikaudu 15 minuti jooksul, kuni maatriksi taust nõrgeneb ja vöödid eristuvad.
- Pildista kohe valge valgusega illuminaatoril.
Agaroos ja polüakrüülamiid käituvad erinevalt. Agaroos hoiab värvainet maatriksis, mistõttu värvaine eemaldamine on aeglane etapp. Õhukesed polüakrüülamiidgeelid värvuvad kiiresti, kuid kaotavad ka värvaine kiiresti; see aitab preparatiivsel väljalõikamisel, kuid raskendab tulemuste dokumenteerimist. Sünteetilisi oligonukleotiide saab polüakrüülamiidis leida sama 0.02-protsendilise lahusega 20 kuni 30 minutiga, kasutades korduvaid veepesusid ja järgides väljakujunenud Current Protocolsi laadis PAGE-meetodeid. Preparatiivsete oligonukleotiidide puhul on kirjeldatud ka väga lahjasid, ligikaudu 0.0002-protsendilisi lahuseid lahjendatud TBE-s, mille toimeaeg on mitu tundi, kuid nende tõendusbaas on nõrgem.
Oluline on, kas tegu on DNA või RNA-ga. Kaheahelaline DNA annab kõige tugevama struktureeritud seondumise. RNA ja üheahelaline DNA värvuvad samuti, kuid nõrgemalt ja vähem ennustatavalt. Formaldehüüdi sisaldavate RNA agaroosgeelide puhul jätab enamik laboreid geelis metüleensinisega värvimise vahele ja kannab RNA esmalt membraanile ning värvib selle seal. Nii asendub nõrk geelisignaal selgema membraanisignaaliga ning saadakse ka dokumenteeritud teave pealekantud koguse kohta.
Teine ülesanne: värvimine membraanidel
Membraani värvimine vastab teisele küsimusele: kas ülekanne õnnestus ja kas rajad on võrreldavad. Klassikaline rakendus on Herrini ja Schmidti pöörduv Northern-bloti värvimine: algses meetodis kasutati 0.04 protsenti värvainet 50 mM naatriumatsetaadis pH 5.0 juures 2 kuni 3 minutit, millele järgnes veega loputamine; enne hübridisatsiooni sai värvaine eemaldada lahja SDS-iga SSPE-s.
Laialt kasutatav tänapäevane variant on järgmine:
- Kanna RNA või denatureeritud DNA nailonile või nitrotselluloosile ja immobiliseeri see seejärel UV-ristsidumise või kuumutamisega, et proov värvimise ajal kaduma ei läheks.
- Valikuline, kuid levinud etapp: niisuta membraani 5-protsendilises äädikhappes ligikaudu 15 minutit.
- Värvi 5 kuni 10 minutit 0.02 kuni 0.04 protsenti metüleensinisega 0.3 kuni 0.5 M naatriumatsetaadis, mille pH on ligikaudu 5.2.
- Loputa ja eemalda värvaine veega 5 kuni 15 minuti jooksul, dokumenteeri ning eemalda seejärel enne hübridisatsiooni värvaine jäägid.
Northern-analüüsides kasutatakse valdavalt positiivse laenguga nailonit. Sama äädikhappe ja atsetaadi töövoog sobib ka nitrotselluloosile. Pilti kasutatakse ülekande kinnitamiseks, 28S- ja 18S-vöötide võrdlemiseks (või bakteriaalse RNA puhul 23S- ja 16S-vöötide võrdlemiseks), suurusmarkerite ja standardite märkimiseks ning RNA koguhulga ligikaudse normaliseerimise dokumenteerimiseks. Avaldatud Northern-meetodites kvantifitseeritakse värvitud ribosomaalseid vööte pealekantud koguse kontrollimiseks, sealhulgas piimandusteaduse uuringus, kus kasutati metüleensinisega värvitud ribosomaalseid vööte normaliseerimiseks. Southern-bloti membraane saab visualiseerida samamoodi, kuid värvaine kasutamine on palju kindlamalt juurdunud Northern-bloti pealekantud koguse ja ülekande kontrollina. Lisaks denatureeritakse Southern-bloti DNA enne ülekannet, mistõttu geeli tundlikkusnäitajaid ei saa sellele üle kanda.
Tuvastuspiirid ja taust: kus sinine jääb alla
Allolev võrdlus on teadlikult ligikaudne. Värvimise tulemus sõltub geeli protsendist, vöödi laiusest, optikast ja värvaine eemaldamise hoolikusest. Käsitle iga arvu suurusjärgu, mitte spetsifikatsioonina.
| Värvaine ja formaat | Ligikaudne tuvastuspiir vöödi kohta | Tõlgendus |
|---|---|---|
| Metüleensinine, dsDNA agaroosis | Optimeeritult 40 kuni 250 ng; konservatiivselt 0.5 kuni 1 mikrogrammi | Piisav preparatiivsete proovikoguste ja õppegeelide jaoks. Nõrk väga väikese kogusega vöötide puhul. |
| Metüleensinine, lühike ssDNA või RNA või oligonukleotiidid PAGE-s | Ligikaudu 0.1 kuni 0.5 mikrogrammi | Sõltub pikkusest ja struktuurist. Üldkehtivat piiri ei ole. |
| Etiidiumbromiid, dsDNA agaroosis | Ligikaudu 1 kuni 10 ng | Florese võrdluses ligikaudu neli korda tundlikum kui optimeeritud metüleensinisega värvimine. Vajab UV-d. |
| SYBR Green I, dsDNA | Ligikaudu 60 pg | Vajab fluorestsentskuvamist. |
| SYBR Gold, DNA ja RNA | Ligikaudu 25 pg | Mitmes formaadis üle kümne korra tundlikum kui etiidiumbromiid. |
| Hõbevärvimine, nukleiinhapped PAGE-s | Ligikaudu 0.3 kuni 0.9 ng; optimeeritud metüleensinise- ja sellele järgneva hõbevärvimise korral on kirjeldatud 100 pg RNA-d | Väga tundlik, kuid keemiliselt keerukas ja proovi eraldamiseks ebasobiv. |
| Toluidiinsinine, RNA ja oligonukleotiidid PAGE-s | Kasutatavad kogused sadades ng-des, dokumenteeritud ligikaudu 250 ng | Nähtav valgus nagu metüleensinise puhul, kuid puudub SYBR-i näitajatega võrreldav standarditud piir. |
Tausta kontroll määrab, kas tagasihoidlik signaal on kasutatav. Vaba värvaine on intensiivse värvusega, mistõttu kontrasti saavutamiseks tuleb eemaldada seondumata värvaine, eemaldamata seondunud värvainet. Suurem värvainekontsentratsioon parandab tundlikkust harva. Peamiselt pikendab see värvaine eemaldamise aega. Katseta lahjendusseeriat täpselt selle geeli, membraani ja kaameraga, mida kasutad, ning kasuta ainult vahemikku, kus integreeritud optiline tihedus jääb võrdeliseks sisendkogusega. Metüleensinine sobib pealekantud koguse poolkvantitatiivseks normaliseerimiseks. See ei ole suure dünaamilise ulatusega kvantitatiivne analüüs, sest membraani mahutavus, ülekande tõhusus, küllastumine ja värvaine eemaldamine varieeruvad radade vahel.
Ühilduvuse piirangud: mis on pärast värvimist võimalik
Kloonimise võimalikkus pärast metüleensinisega värvimist on tõendatud. Flores ja kolleegid lõikasid värvitud agaroosvöödid välja, eraldasid DNA ning ligeerisid selle ja kasutasid transformatsiooniks; nad teatasid paremast kloonimistulemusest kui pärast etiidiumbromiidi kasutamist koos UV-ga. Tõenäoline põhjus on väiksem fotokahjustus, mitte värvaine enda kasulik mõju. Hoia kokkupuude valge valgusega lühike ja puhasta eraldatud DNA tavapärase geelist eraldamise puhastusmeetodiga.
PCR-i ja sekveneerimise kohta on vähem tõendeid. Värvaine jäägid seonduvad nukleiinhapetega, seega eemalda värvaine ja puhasta proov enne ensümaatilisi etappe. Korralikult puhastatud DNA metüleensinisega värvitud geelist peaks toimima, kuid eri polümeraaside ja sekveneerimiskeemiate taluvus otseselt kaasa kanduva värvaine suhtes ei ole hästi kvantifitseeritud. Ära seda eelda.
Bloti hübridisatsioon on ühilduv, kui järjekorda rangelt järgitakse: ülekanne, immobiliseerimine, värvimine, dokumenteerimine, värvaine eemaldamine, hübridisatsioon. See järjestus on Herrini ja Schmidti meetodi alus. Värvimine enne ülekannet või värvaine eemaldamise vahelejätmine on teine meetod ja vajab eraldi valideerimist. Pärast värvaine eemaldamist saab tavapäraselt jätkata sondi eemaldamise ja uue sondiga hübridiseerimisega. Sama värvaineperekonna kasutamise kohta rakkude värvimisel ning selle kohta, miks fikseeritud preparaadi loogika ei sobi elusrakumeetoditele, vaata mikroskoopiliste värvimismeetodite atlast.
Vöötide väljalõikamine sobib preparatiivse agaroosi ja metüleensinise abil leitud PAGE-oligonukleotiidide puhul, kui välditakse püsiva fikseerimise varianti. Elektroelueerimine pärast värvaine eemaldamist on pöörduvalt seonduva värvaine puhul keemiliselt usutav, kuid konkreetselt metüleensinise kohta on vähe kontrollitud saagiseandmeid. Pärast elueerimist eemalda soolad või sadesta proov.
Korduvad probleemid
Nõrgad geelivöödid tähendavad tavaliselt kolorimeetrilise värvimise jaoks liiga väikest massi, eriti lühikeste üheahelaliste või RNA-sihtmolekulide puhul. Kanna geelile rohkem proovi, kasuta värsket värvainelahust, pikenda värvimist enne kontsentratsiooni suurendamist ja lõpeta värvaine eemaldamine varem. Ühtlaselt sinine kontrastita geel viitab tavaliselt ülevärvimisele või liiga vähestele veevahetustele. PAGE-vöötide tuhmumine on ootuspärane keemiline nähtus, mitte värvimise ebaõnnestumine. Pildista kiiresti. Ebaühtlane membraanitaust viitab voltidele, mullidele, sõrmejälgedele, ebaühtlasele loksutamisele või laigulisele ülekandele. Ära tõlgenda seda hübridisatsioonikontrollita ebaühtlase pealekandmisena. Laialivalguv nõrk ribosomaalne muster võib viidata lagunemisele, kuid ka mittetäielikule ülekandele, liiga väikesele RNA koguhulgale (tüüpilistele radadele kantakse mitu kuni kümneid mikrogramme) või liigsele värvaine eemaldamisele. Värvaine näitab rohket ribosomaalset RNA-d. See ei näita konkreetset transkripti. See ülesanne kuulub sondile.
Ohutus ja käsitsemine ilma liialdusteta
Metüleensinist on lihtsam käsitseda kui etiidiumbromiidi, kuid see ei ole ohutu aine. MilliporeSigma kehtiv ohutuskaart liigitab värvaine ägeda suukaudse mürgisuse 4. kategooriasse ehk allaneelamisel kahjulikuks ning nõuab kõrvaldamist heakskiidetud jäätmekäitlusviisi kaudu, nagu on kirjas Sigma-Aldrichi metüleensinise ohutuskaardil. Etiidiumbromiidil on tugevamad genotoksilisuse hoiatused, sealhulgas kahtlustatav mõju sugurakkudele selle Sigma-Aldrichi etiidiumbromiidi ohutuskaardil, ning selle geelid ja lahused kogutakse tavaliselt eraldi ohtlike keemiliste jäätmetena, nagu märgitakse Thermo Fisheri nukleiinhappevärvide juhendis. Järgi mõlema puhul ohutuskaarti ja asutuse eeskirju. Hoia kuiv värvaine tihedalt suletuna ja kuivana, kasuta töölahust korduvalt ainult protokollis lubatud viisil, säilita värvitud membraane kuivalt filterpaberilehtede vahel ning pildista geelid enne, kui vöödid difusiooni tõttu hajuvad.
Pea meeles tööpingi põhimõtet. Geelid kontrollivad suure proovikoguse nähtavust valges valguses. Membraanid kontrollivad ülekannet ja pealekantud kogust enne, kui sond teeb tundlikkust nõudva töö. Üks värvaine teenib mõlemat eesmärki: tagasihoidliku tundlikkuse, pöörduva seondumise ja range tööjärjekorraga.