
Artikel
Når methylenblåt forstyrrer det forsøg, der bruges til at måle det
Et laboratorium opdrætter zebrafiskeembryoner i methylenblåt ved den koncentration, der normalt bruges i opdræt, og måler derefter stofskiftet på to måder. På dag et viser en Seahorse-analysator et stigende iltforbrug. På dag fire og fem viser en Alamar Blue-plade et faldende energiforbrug. Samme farvestof, samme fiskelinje, modsatte konklusioner. Så kommer den diskrete kontrol: Brønde med methylenblåt og Alamar Blue-reagens, men helt uden fisk, giver også et svagere signal end reagenset alene. En del af resultatet skyldtes biologi. En del skyldtes, at farvestoffet bedømte sin egen eksamen. Denne opdeling, dokumenteret i et studie fra 2025 i Communications Biology om methylenblåt i zebrafisk under udvikling, er det typiske mønster for assayinterferens fra methylenblåt. Det er derfor, redoxaktive farvestoffer kræver kontroller, som almindelige teststoffer ikke gør.
Hvad et resazurinassay faktisk viser
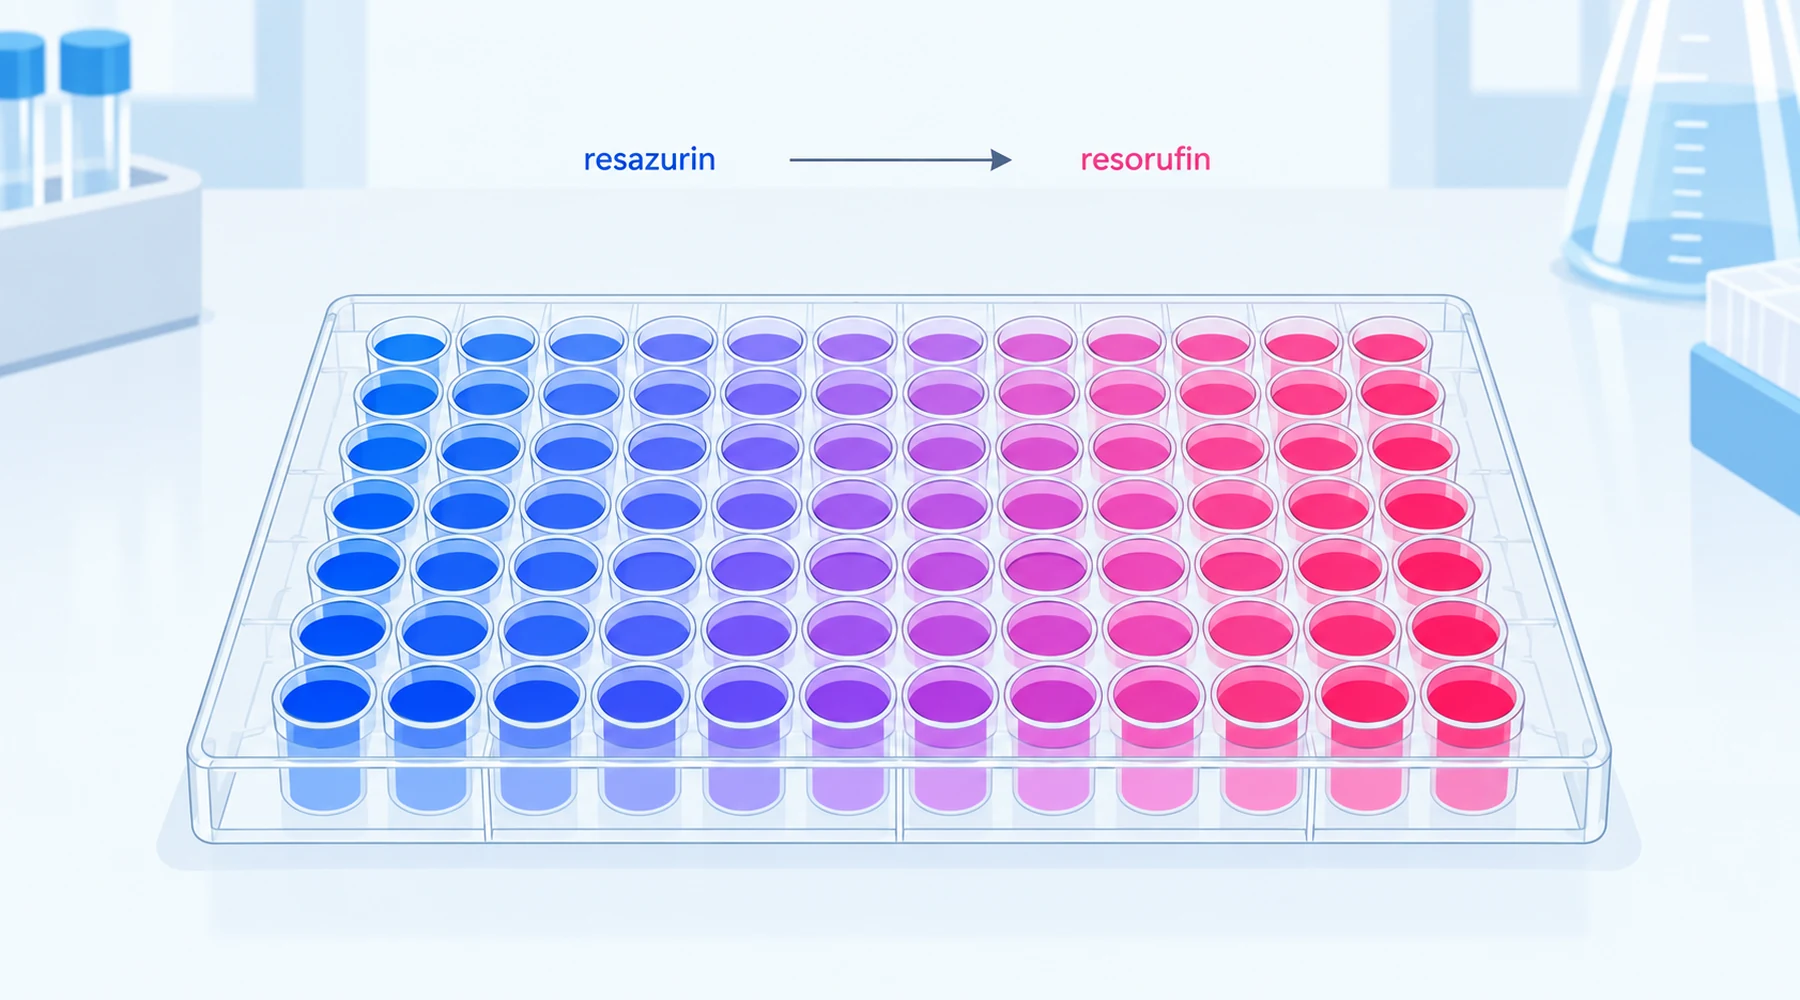
Alamar Blue er et mærkenavn for en resazurinopløsning, så interferens fra methylenblåt i Alamar Blue og interferens fra methylenblåt i resazurinassays beskriver samme sammenstød. Oxideret resazurin er blåt og kun svagt fluorescerende. Metabolisk aktive celler reducerer det til resorufin, som er lyserødt og kraftigt fluorescerende nær en excitationsbølgelængde på 560 nm og en emissionsbølgelængde på 590 nm. Ifølge producentens mikropladeprotokol er de anvendelige områder omkring 530 til 570 nm for excitation og 580 til 610 nm for emission. Fortsætter reduktionen, omdannes resorufin til dihydroresorufin, som er svagt fluorescerende. For mange celler eller for lang inkubation i brønden får derfor kalibreringskurven til at bøje nedad i den øvre ende.
Elektronerne kommer hovedsageligt fra NADH og NADPH via cellulære reduktaser og diaforaser i cytosol, mikrosomer og mitokondrier. Målingen viser derfor en samlet reduktionskapacitet, ikke et antal levedygtige celler og heller ikke en mitokondriemåling. Et højere signal kan betyde flere celler, større reduktionsflux pr. celle eller begge dele. Et stof, der omdirigerer NADH, ændrer signalet uden at dræbe en eneste celle. Hav den sætning i baghovedet, for det er netop omdirigering af NADH, methylenblåt lever af.
To interferensmekanismer, ét lavere signal
Methylenblåt forvrænger en resazurinmåling gennem to uafhængige mekanismer, og hver af dem kan alene sænke den tilsyneladende fluorescens.
Mekanisme 1 er optisk. Methylenblåt absorberer kraftigt i det røde område med et monomerbånd nær 660 til 665 nm og en dimerskulder nær 607 til 610 nm, hvis hale strækker sig tilbage mod resorufins emission omkring 590 nm. Farvestof i lysvejen absorberer noget af excitationslyset og genabsorberer noget af den udsendte fluorescens. Denne indre filtereffekt svækker signalet fra brønden, selv når produktionen af resorufin er uændret. Spektret ændrer sig også med farvestoffets tilstand: En faktoranalyse af methylenblåts spektre i vand og cyclodextrinopløsninger skelner mellem monomer, dimer og vært-gæst-kompleks som tre arter med forskellige ekstinktionskoefficienter fra 500 til 700 nm. Størrelsen af den optiske fejl varierer derfor med koncentration, aggregering og binding. I forsøget skal almindelig optisk dæmpning skelnes fra molekylær quenching med det genfindingsforsøg efter tilsætning, der beskrives nedenfor, fordi løsningen er forskellig.
Mekanisme 2 er redoxkonkurrence. Oxideret methylenblåt modtager elektroner fra NAD(P)H og danner farveløst leukomethylenblåt, som molekylært ilt oxiderer tilbage til den blå form. Samtidig dannes reducerede iltprodukter, herunder hydrogenperoxid. Hver omgang i denne cyklus forbruger reduktionsækvivalenter, som ellers ville reducere resazurin, og forbruger ilt, mens der samtidig dannes peroxid. Et lavere Alamar Blue-signal kan derfor betyde, at elektronerne løb gennem methylenblåtcyklussen i stedet for at danne resorufin. På pladen fremstår det som nedsat stofskifte, uanset hvad cellerne gjorde. Den samme kemi forklarer en spejlvendt faldgrube i iltmåleinstrumenter: Reduceret farvestof, som genoxideres af ilt, driver et kemisk iltforbrug uden nogen biologi til stede. Blindprøver med farvestof hører derfor også hjemme i respirometri, som sammenligningen af målinger af ilt, ATP og membranpotentiale beskriver for mitokondriemålinger.
Både signalet og biologien kan være ændret
Zebrafiskstudiet er værdifuldt, netop fordi det afviser det lette enten-eller. Biologien var reel: Det basale iltforbrug steg hos 1 dag gamle embryoner ved begge opdrætskoncentrationer, ATP-koblet respiration steg ved den laveste, membranpotentialet målt med JC-10-proben steg på dag to, og transkripter for mitokondriekomplekser faldt på dag et og fire. Artefaktet var også reelt: Fisk, der blev vasket tre gange før Alamar Blue-trinnet, havde stadig synlig blå farvning i hovedet, munden og lugteregionen, og cellefri brønde med farvestof og reagens mistede i sig selv en lille, men signifikant mængde fluorescens. Faldene i Alamar Blue-signalet fra hele organismer på dag fire og fem var større end den cellefri effekt. Forfatterne fortolkede derfor resultatet som en reel metabolisk ændring set gennem en let forvrænget linse. Det er den rigtige forståelsesmodel. Et redoxcyklende stof, som også absorberer blåt, vil normalt påvirke både den undersøgte proces og reporterkemien samtidig. Kontrollernes opgave er at bestemme størrelsen af hvert bidrag, ikke at erklære et af dem for indbildt. En beslægtet lære kommer fra arbejdet med cyclodextrinbinding: Når et værtsmolekyle indkapslede farvestoffet, aftog både farvningen og aktiveringen af glukoseoptagelsen. Det tydede på, at den metaboliske effekt krævede direkte interaktion med farvestoffet frem for diffus redoxpåvirkning. At sammenholde en fysisk måling af farvestoffet med en funktionel måling er netop det greb, der skelner mekanisme fra artefakt, og vejledningen i at læse farvestofbaserede metaboliske påstande videreudvikler denne tilgang.
Kontrollerne, der skelner dem fra hinanden
Udfør disse kontroller, før du fortolker noget resultat fra en resazurinplade med methylenblåt. Koncentrationer, medium, inkubationstid og belysning skal svare nøjagtigt til celleforsøget, fordi alle mekanismerne ovenfor afhænger af dem.
| # | Kontrol | Hvad den påviser | Godkendelseskriterium | Hvis den ikke består |
|---|---|---|---|---|
| 1 | Medium og farvestof, intet reagens, ingen celler | Farvestoffets baggrund ved assayets bølgelængder | Baggrunden er lille i forhold til cellesignalet | Fratræk blindprøver for hver koncentration, aldrig én fælles blindprøve |
| 2 | Medium og reagens, intet farvestof, ingen celler | Spontan reduktion af reagenset | Lav, stabil basislinje gennem inkubationen | Forkort inkubationen, skift medium, eller accepter et højere bundniveau |
| 3 | Medium, farvestof og reagens, ingen celler | Direkte kemi mellem farvestof og reagens | Samme som kontrol 2 inden for støjen | Rapportér forskellen, tilskriv den ikke cellerne |
| 4 | Tilsætning af resorufin til brønde med henholdsvis vehikel og farvestof | Optisk dæmpning eller quenching | Samme genfinding i begge matricer | Kvantificér tabet for hver farvestofdosis og korrigér, eller skift målemetode |
| 5 | Vasket versus uvasket cellefri overførsel | Resterende farvestof efter dine vasketrin | Vask fjerner den cellefri effekt | Internaliseret farvestof bliver tilbage, så kontrol 3 og 4 gælder stadig |
Kontrol 3 og 4 er det par, de fleste artikler springer over, og som de fleste artikler om methylenblåt har brug for. Kontrol 3 fanger kemien, kontrol 4 fanger optikken, og tilsammen afgrænser de artefaktet, før der fremsættes nogen biologisk påstand.
Ortogonale målinger, hver med sine egne forbehold
Intet enkelt supplerende assay kan blåstemple det første. Hver ortogonal måling undgår én mekanisme og forbliver udsat for en anden. Vælg derfor en kombination, hvis blinde vinkler ikke overlapper. Matricen til valg af assay for redoxaktive stoffer gennemgår logikken bag kombinationerne, og vejledningen om membranpotentialeprober beskriver fluorescensforbeholdene i detaljer.
Seahorse-målinger af iltforbrug følger elektronerne til ilt i stedet for til resorufin og omgår dermed reporterkemien helt. Men farvestoffet forbruger også ilt kemisk, så blindprøver med farvestof uden mitokondrier i komplet medium er nødvendige. ATP-luciferaseassays bruger bioluminescens i stedet for resorufinfluorescens og undgår dermed både det optiske overlap og konkurrencen om reduktaserne. Til gengæld viser de balancen i ATP-puljen frem for syntesefluxen. Membranpotentialeprober som TMRM eller JC-10 viser, om ladningsgradienten opretholdes, men de fluorescerer i det samme synlige område, som farvestoffet absorberer i. Resterende blå farvning komplicerer derfor også disse målinger, og de kræver blindprøver med kun farvestof ved hver farvestofdosis. Transkriptmålinger af respirationskompleksernes underenheder undgår optik helt og integrerer over timer, hvilket supplerer plademålinger på minutskala.
Det mindste troværdige grundlag for en metabolisk påstand om methylenblåt er derfor: et resazurinresultat med kontrol 1 til 4, plus ét ikke-resazurinbaseret endepunkt med et andet fysisk princip, plus en udtrykkelig vurdering af, om ændringen afspejler celleantal, reduktionsflux pr. celle eller begge dele. Med mindre end det kan læseren ikke skelne et lavere stofskifte fra et svagere lyssignal i brønden.
Arbejdsark til interferenskontrol
Kopiér dette arbejdsark ind i laboratoriejournalen for hvert forsøg, der kombinerer farvestoffet med en redoxreporter. Det er det originale arbejdsmateriale til denne artikel: Udfyld én række pr. farvestofkoncentration.
A. Signalveje. Registrér for hver koncentration: forventet monomer- versus dimerregime (lave mikromolære koncentrationer versus flere tiere mikromolært og derover), absorbansen af brøndens endelige indhold ved 590 nm i en cellefri brønd samt genfindingsprocenten efter tilsætning af resorufin. Hvis genfindingen falder til under omkring 90 procent, skal alle fluorescensværdier ved den dosis behandles som optisk reducerede, ikke som biologisk præcise.
B. Kemikontrol. Registrér fluorescensen fra cellefrie prøver med farvestof og reagens som en procentdel af basislinjen for reagens alene ved hvert måletidspunkt. Hvis forskellen vokser med tiden, reagerer farvestoffet med reportersystemet under assayet, og målinger kun ved endepunktet vil være misvisende. Overvej kinetiske målinger eller en anden reporter.
C. Biologisk krydskontrol. Angiv den ortogonale måling, der er valgt til dette forsøg, dens egen farvestofblindprøve og det forventede resultat, hvis resazurinresultatet er reelt. En reel metabolisk nedgang bør ændre et uafhængigt endepunkt i en tilsvarende retning. Hvis det ortogonale endepunkt er uenigt, skal du endnu ikke stole på nogen af resultaterne. Lav forsøgsdesignet om i stedet for at tage gennemsnittet af de to.
D. Konklusionssætning. Skriv én sætning med formen: Ved den angivne dosis og det angivne stadium ændrede resazurinsignalet sig med den angivne størrelse, hvoraf den angivne del er et cellefrit artefakt, og det ortogonale endepunkt (stemmer overens eller stemmer ikke overens). Hvis et felt er tomt, er forsøget ikke færdigt.
Methylenblåt er fortsat en nyttig metabolisk probe, og arbejdet med zebrafisk viser reelle mitokondrielle effekter ved doser, som mange faciliteter dagligt hælder i afløbet. Farvestoffet insisterer blot på at blive målt med instrumenter, det ikke kan påvirke. Giv det brønde med kun farvestof, et genfindingsforsøg efter tilsætning og én måling baseret på et andet fysisk princip. Så holder interferensen op med at være en fælde og bliver til en størrelse, der kan sættes tal på.