
Artikel
Måling af reaktive iltforbindelser i forsøg med methylenblåt
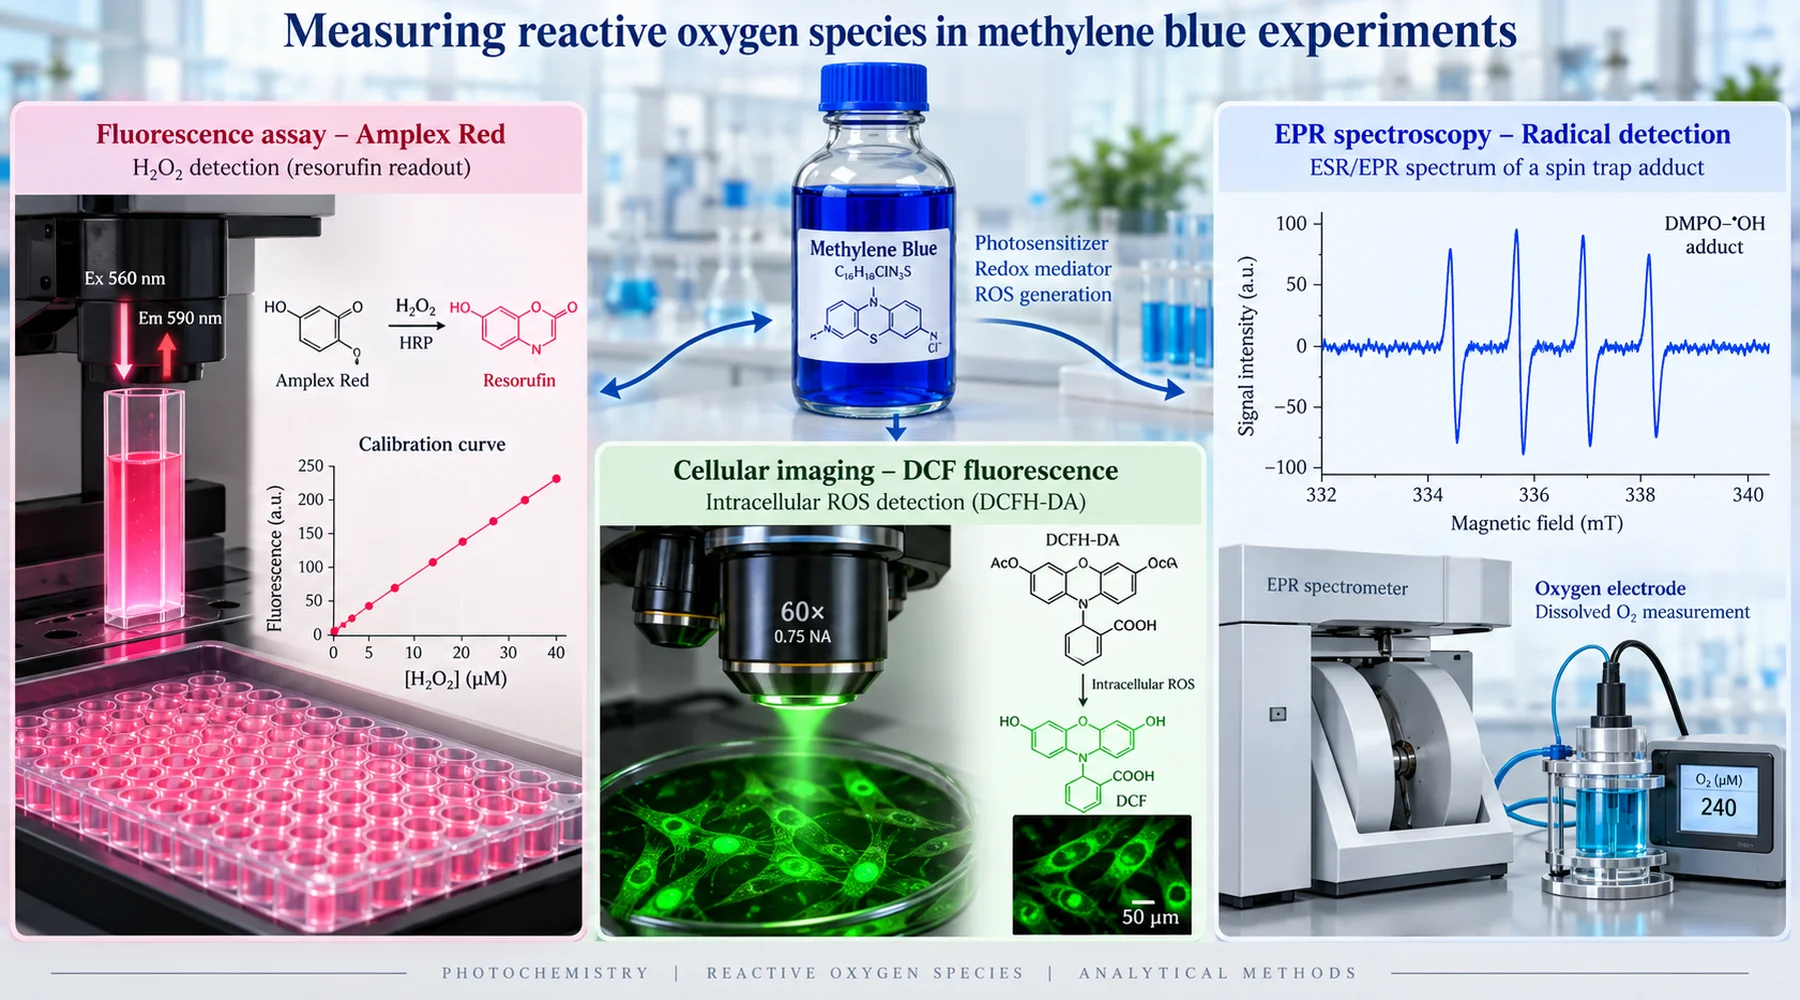
To laboratorier udfører det, de hver især kalder et antioxidantforsøg med methylenblåt. Det ene rapporterer, at farvestoffet undertrykker reaktive iltforbindelser. Det andet rapporterer, at det danner dem. Begge viser tydelige dosis-respons-kurver. Begge er oprigtige. Forskellen skyldes hverken svindel eller inkompetence. Den skyldes, at de to grupper målte forskellige ting under forskellig belysning med prober, der besvarer forskellige spørgsmål, og derefter beskrev begge svar med samme ord: ROS.
Methylenblåt er et vanskeligt molekyle at måle præcist, fordi det deltager i den kemi, det skal bruges til at observere. I mørke transporterer det elektroner mellem donorer og acceptorer og vender tilbage til sin oprindelige form, klar til endnu en cyklus. Under belysning bliver det en fotosensibilisator og når en exciteret triplettilstand, hvorfra det kan overføre energi til ilt og danne singletilt eller overføre elektroner og danne radikaler og hydrogenperoxid. Enhver probe, der placeres i dette system, kan blive oxideret, reduceret, bleget eller optisk maskeret af selve farvestoffet. Derfor er det første spørgsmål ved enhver ROS-måling aldrig, hvad tallet er. Det er, hvad analysen faktisk detekterer, og hvad farvestoffet gør ved analysen.
Amplex Red: en kalibreret hydrogenperoxidanalyse
Kombinationen af methylenblåt og Amplex Red er den mest fagligt forsvarlige i denne litteratur, når forsøget er sat korrekt op. Kemien er specifik: peberrodsperoxidase bruger hydrogenperoxid til at oxidere Amplex-substratet til et fluorescerende produkt, resorufin, med en støkiometri på omtrent én til én. Peroxid fra prøven bliver til fluorescens i detektoren. Ingen andre forbindelser i den klassiske ROS-familie driver denne reaktion direkte.
Den afgørende fordel er kalibrering. En omhyggelig forsøgsudfører måler kendte peroxidstandarder i samme buffer med samme koncentrationer af peroxidase og substrat, samme inkubationstid og samme optiske indstillinger og aflæser derefter prøverne ud fra denne kurve. I studiet af isolerede hjernemitokondrier, som denne metode bygger på, gjorde forfatterne netop det: De tilsatte kendte mængder peroxid ved afslutningen af hver måleserie, og tallene blev rapporteret som hastigheder i picomol pr. minut pr. milligram protein frem for vilkårlige fluorescensenheder. Det er det, der gør et lyssignal til en måling.
Tre detaljer fra dette studie er værd at efterligne. For det første verificerede forfatterne signalet med katalase, som nedbryder peroxid. Den methylenblåt-inducerede stigning i fluorescens stoppede, da katalase blev tilsat, hvilket bekræftede, at signalet skyldtes peroxid og ikke en optisk artefakt. For det andet undersøgte de belysningen direkte ved at afskærme excitationsstrålen, så prøverne modtog en ottendedel af den normale lysdosis, og signalet faldt kun med ni procent. Mere end halvfems procent af det peroxid, de rapporterede, var uafhængigt af målelyset. For det tredje målte de peroxidfjernelsen separat med en elektrode og fandt, at farvestoffet både øgede produktionen og bremsede fjernelsen. En probe, der kun rapporterer nettofluorescens, ville have blandet disse to effekter sammen.
Analysen har stadig fejlkilder, og methylenblåt rammer flere af dem. Farvestoffet absorberer bredt i det samme røde område, hvor resorufin emitterer, så ved høje farvestofkoncentrationer kan prøven maskere sit eget signal gennem indre filtereffekter. Standarderne bør derfor indeholde samme farvestofkoncentration som prøverne. Amplex Red kan også fotooxidere af sig selv, og dets produkt resorufin kan indgå i fotoredoxcyklusser, der danner superoxid og peroxid. Det har stor betydning, når forsøget også belyser en fotosensibilisator. Den praktiske løsning er først at bestråle prøverne med methylenblåt og derefter analysere delprøver med Amplex-reagenser i mørke frem for at belyse farvestof og probe sammen. Endelig undertrykker superoxiddismutase ikke blot et Amplex-signal: Omdannelse af superoxid til peroxid kan øge det. En SOD-kontrol, der øger fluorescensen, er ikke slået fejl. Den har identificeret superoxid som en forudgående forbindelse i reaktionskæden.
DCFDA: en uspecifik oxidationsindikator
Kombinationen af methylenblåt og DCFDA er kilden til størstedelen af forvirringen. DCFH-DA er en forløber, der kan optages i celler. Esteraser inde i cellen fjerner dets acetatgrupper og efterlader ikke-fluorescerende DCFH, og oxidation af DCFH giver fluorescerende DCF. Listen over forbindelser, der oxiderer det, er lang: hydroxylradikaler, peroxidase- og hæm-mellemprodukter, nitrogendioxid, hypoklorsyre og radikaler afledt af peroxynitrit. Hydrogenperoxid alene oxiderer det ikke direkte med nogen praktisk anvendelig hastighed; peroxidafhængig fluorescens kræver generelt, at jern, hæmproteiner eller peroxidasekemi indgår i reaktionsforløbet.
Den kritik, som ethvert metodeafsnit bør henvise til, stammer fra Kalyanaraman og kollegers analyse af DCFH som probe, gengivet i studiet af hjernemitokondrier, der forkastede DCFDA af denne grund. Analysen viste, at proben reagerer langsomt, med ukarakteriseret støkiometri, uden gyldig kalibrering og med forbindelser, der ikke er ROS. Proben forstærker også det, den måler: Én-elektronoxidation af DCFH danner et DCF-radikal, som reagerer med ilt og danner superoxid, der dismuterer til yderligere peroxid. Målingen skaber delvist selv den kemi, den rapporterer.
Intet af dette gør DCFDA ubrugeligt. Det gør det til en screening, ikke en identifikation. En stigning i DCF-fluorescens betyder, at den oxidantafhængige oxidation af proben er steget. Det betyder ikke, at peroxid er steget, og det betyder bestemt ikke, at den samlede mængde ROS er steget – en størrelse, som ingen enkelt probe måler. Tidligere arbejde med methylenblåt, der byggede på DCF-oxidation ved koncentrationer over én mikromolar, rapporterede prooxidante effekter, mens andre systemer fra samme periode viste beskyttelse mod peroxidinduceret celledød. Begge observationer kan være sande for det samme farvestof i forskellige redoxmiljøer, og DCF-resultatet alene kan ikke afgøre, hvilken oxidant der gav signalet. Det væsentlige ved det tidligere arbejde med hjernemitokondrier er, at det erstattede denne screening med en kalibreret peroxidmåling og påviste belastningen direkte: Selv hundrede nanomolar farvestof øgede peroxidfrigivelsen flere gange på tværs af alle undersøgte substrater og respirationstilstande.
DCFDA rummer endnu en faldgrube, der er specifik for methylenblåt. Farvestoffet er kraftigt farvet og redoxaktivt, så det kan blege fluorescensen, slukke emissionen eller oxidere proben uafhængigt af cellulære ROS. En cellefri kontrol med farvestof og probe, men uden celler, er ikke valgfri pynt. Det er det forsøg, der fortæller dig, om farvestoffet interagerer med proben.
Spinindfangning og iltoptagelse: identitet og flux
Hvor de fluorescerende prober rapporterer, at noget oxiderbart er dukket op, giver elektronspinresonans med spinfælder et svar, der kommer tættere på, hvad det var. Det klassiske studie af methylenblåts fotokemi brugte ESR til at detektere ascorbatradikalet fra farvestof, ascorbat og lys og påviste derefter peroxiddannelse i forsøg med iltoptagelse og jernkatalyseret dannelse af hydroxylradikaler i forsøg med spinindfangning. Hver teknik besvarede det spørgsmål, som de andre ikke kunne: ESR gav radikalets identitet, iltoptagelse gav reaktionsfluxen uafhængigt af enhver fluorescerende probe, og kombinationen viste, at både singletilt- og radikalreaktionsveje var aktive i det samme belyste system.
Dette resultat fra 1984 læses stadig som en advarsel. Under belysning og med et reduktionsmiddel til stede dannede farvestoffet peroxid, og med jern til stede producerede systemet hydroxylradikalet, den mest reaktive forbindelse blandt de undersøgte. Forfatterne forbandt dette med ascorbat i øjet og satte spørgsmålstegn ved ukritisk brug i øjenbehandling. Nutidens læsere bør bemærke betingelserne: lys plus reduktionsmiddel plus jern. Fjernes blot én af disse, svækkes eller forsvinder reaktionsvejen.
Iltelektroder gør sig fortjent til deres plads på en anden måde. En elektrode af Clark-typen måler nettoiltforbruget, hvilket fastslår, at farvestofdrevet redoxkemi forbruger molekylært ilt, og giver kinetiske data, som ingen fluorescensartefakt kan efterligne. Den identificerer ikke produktet. Peroxid, superoxid, vand og henfald af singletilt forbruger alle ilt. Flux uden identitet er lige så ufuldstændig som identitet uden flux, og derfor kombinerer de stærke studier elektroden med en kalibreret peroxidanalyse eller en fælde.
Hvorfor antioxidantresultater er modstridende
Når de tre målemetoder stilles op ved siden af hinanden, kan de tilsyneladende modsigelser i litteraturen om methylenblåt forklares med metodeforskelle samt tre biologiske forhold.
For det første er farvestoffet både en elektrontransportør og en peroxidkilde. Ved at lede elektroner væk fra de steder i respirationskæden, hvor ilt ellers ville blive til superoxid, kan det sænke én ROS, mens dets reducerede form reducerer ilt direkte til peroxid og dermed øger en anden. Et laboratorium, der arbejder med mitokondriel redoxkemi og farvestoffets rolle som omvej for elektroner, bør derfor forvente probeafhængige svar: En superoxidfølsom måling falder, mens en peroxidmåling stiger i den samme kuvette.
For det andet er peroxid ved lave doser et signal, ikke blot en kilde til skade. Det studie af musehjernemitokondrier, der fulgte efter det tidligere arbejde, fandt peroxiddannelse fra helt ned til halvtreds nanomolar farvestof uden skader på mitokondrielt DNA ved terapeutiske niveauer og beskyttelse mod rotenoninducerede skader efter forbehandling. Først ved hundrede mikromolar, langt over det terapeutiske område, beskadigede farvestoffet udvalgte DNA-fragmenter, og rødt lys plus tyve mikromolar farvestof dannede singletilt, der beskadigede alle undersøgte fragmenter. Den foreslåede mekanisme er hormetisk: En beskeden peroxidproduktion udløser Nrf2-knyttede antioxidantforsvar og mitokondriel biogenese, så en prooxidant måling på kort sigt går forud for et antioxidantresultat på længere sigt. En analyse aflæst efter én time og en analyse aflæst efter én dag kan give forskellige resultater, fordi biologien har ændret sig mellem målingerne.
For det tredje afgør lyset, hvilket molekyle der overhovedet er til stede. Belysning demethylerer farvestoffet til Azure B og beslægtede produkter, og mikroskoplampen over en skål er nok til at fotosensibilisere det. Forsøg i mørke og under belysning er forskellige forsøg, og afsnittet om kontroller for belysning og håndtering af farvestof i enhver protokol bør behandle dem som sådan.
Et minimum af kontroller, og hvordan enhver påstand skal læses
Sammenligningen nedenfor er denne artikels originale referenceoversigt. Før du accepterer et ROS-resultat for methylenblåt, skal du kontrollere, hvilke rækker forfatterne har dækket, og hvilke de har sprunget over.
| Kontrol | Hvad den udelukker | Sådan udføres den |
|---|---|---|
| Mørke versus defineret belysning | Sammenblanding af redoxeffekter i grundtilstanden og fotokemi | Samme farvestof, samme matrix, én forsøgsarm i mørke, én under en målt lysdosis |
| Probe plus lys, uden farvestof | Probens fotokemi | Belys proben alene; ethvert signal udgør artefaktens basisniveau |
| Farvestof plus lys, uden celler eller substrat | Forveksling af cellulære ROS med ROS fra selve farvestoffet | Cellefri matrix; fastslår, hvad farvestoffet danner alene |
| Katalase | Signal, der ikke skyldes peroxid, i en Amplex-analyse | Signalet bør falde; bemærk, at belyst farvestof kan beskadige selve katalasen |
| SOD | Superoxids medvirken | En stigning i Amplex-signalet peger på superoxid tidligere i reaktionskæden, ikke på analysesvigt |
| Jernchelator såsom deferoxamin | Hydroxylkemi af Fenton-typen | Tester, om redoxaktivt jern står bag DCFH- eller fældesignalet |
| Peroxidstandarder i den fulde matrix | Ukalibreret fluorescens | Kendte peroxidtilsætninger med identisk farvestofkoncentration og optik |
Heraf følger en praktisk læseregel. Kalibreret Amplex med peroxidase og en katalasekontrol giver evidens om peroxid. DCFDA giver evidens om uspecifik oxidation af proben og intet mere. Spinindfangning med radikalfangerkontroller giver evidens om radikalernes identitet. Iltoptagelse giver evidens om flux. En sætning, der påstår mere, end dens analyse kan understøtte, er uanset hvor selvsikkert den er skrevet en sætning om proben, ikke om farvestoffet. Relaterede gennemgange af dosisafhængighed og det hormetiske område, mitokondriel elektronstrøm, analyseinterferens i farvede prøver og belysningsartefakter ved mikroskopi uddyber hvert af disse punkter, og hvert punkt forbliver gyldigt, når dets pladsholderreference er erstattet.