
Artikel
Meting van reaktiewe suurstofspesies in metileenblou-eksperimente
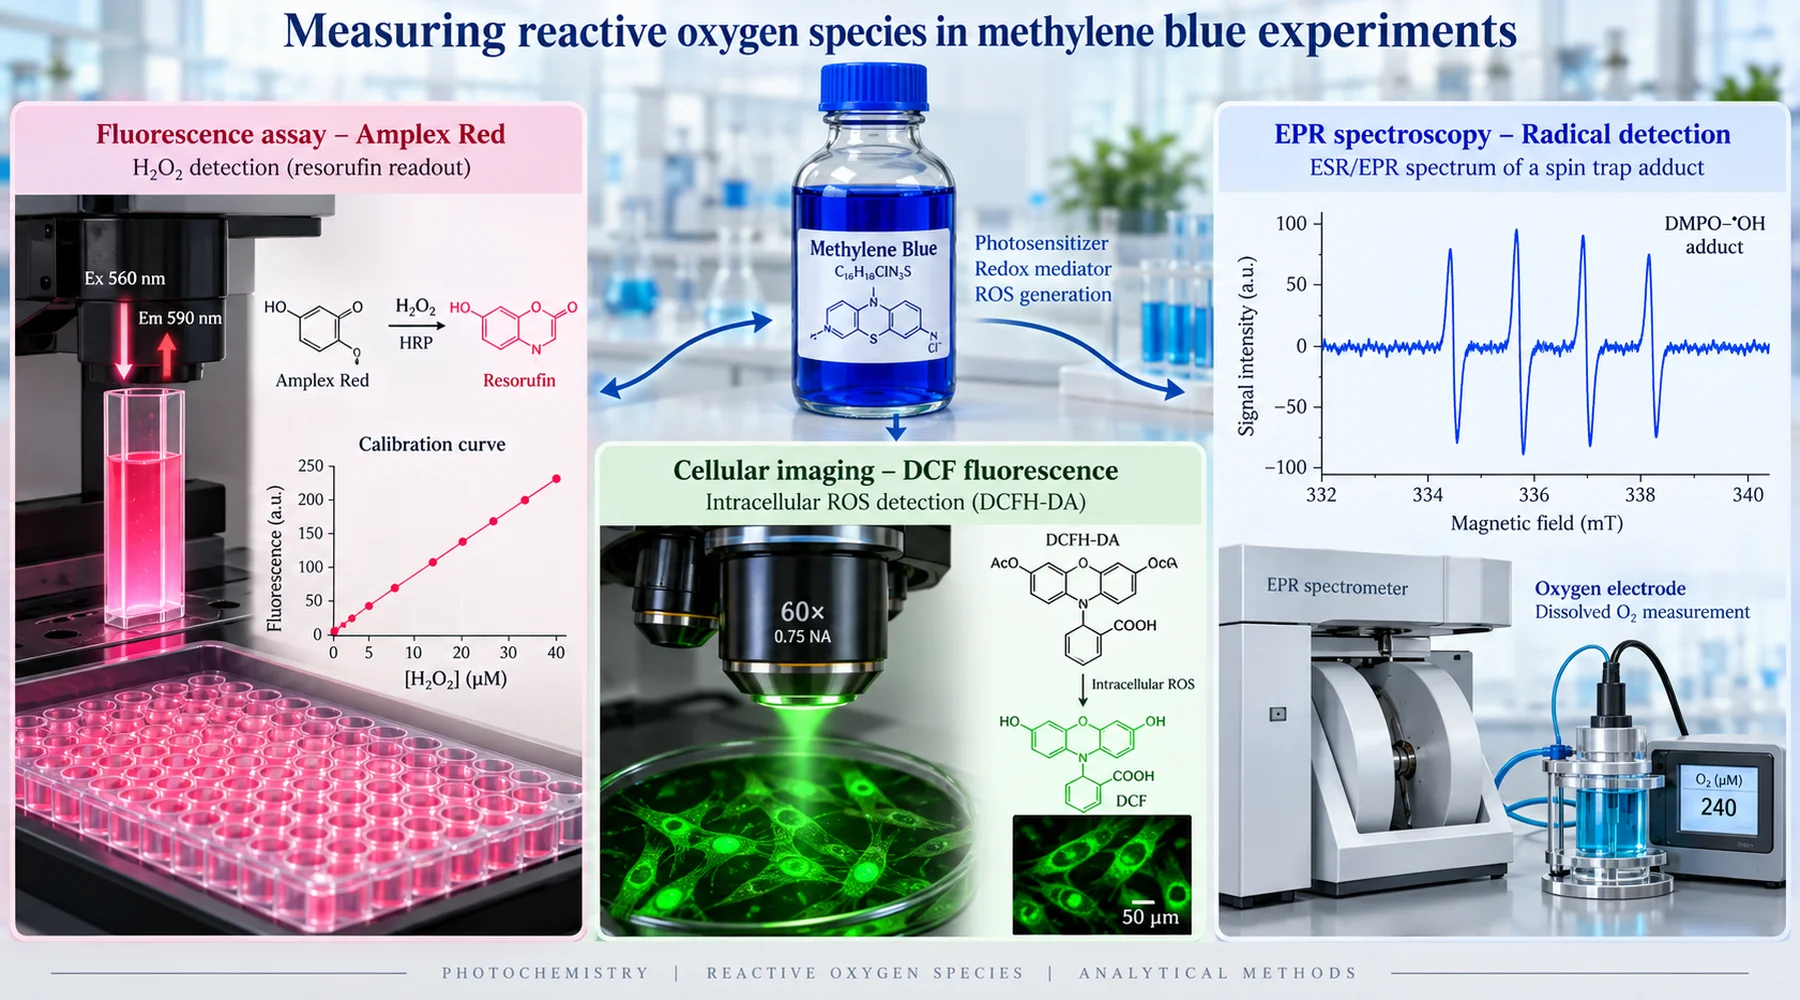
Twee laboratoriums voer uit wat elkeen ’n metileenblou-antioksidanteksperiment noem. Die een rapporteer dat die kleurstof reaktiewe suurstofspesies onderdruk. Die ander rapporteer dat dit hulle genereer. Albei toon duidelike dosis-responskrommes. Albei is opreg. Die verskil is nie bedrog of onbekwaamheid nie. Dit is dat die twee groepe verskillende dinge onder verskillende beligting gemeet het, met sondes wat verskillende vrae beantwoord, en toe albei antwoorde met dieselfde woord beskryf het: ROS.
Metileenblou is ’n moeilike molekule om presies te meet omdat dit deelneem aan die chemie wat dit veronderstel is om waar te neem. In die donker dra dit elektrone tussen skenkers en ontvangers oor en keer terug na sy beginvorm, gereed om die siklus te herhaal. Onder lig word dit ’n fotosensitiseerder wat ’n aangeslane triplettoestand bereik, vanwaar dit energie aan suurstof kan oordra om singletsuurstof te vorm, of elektrone kan oordra om radikale en waterstofperoksied te vorm. Enige sonde wat in daardie stelsel geplaas word, kan deur die kleurstof self geoksideer, gereduseer, gebleik of opties gemaskeer word. Die eerste vraag oor enige ROS-meetlesing is dus nooit wat die getal is nie. Dit is wat die toets werklik opspoor, en wat die kleurstof aan die toets doen.
Amplex Red: ’n gekalibreerde waterstofperoksiedtoets
Die kombinasie van metileenblou en Amplex Red is die mees verdedigbare kombinasie in hierdie literatuur, mits dit korrek opgestel word. Die chemie is spesifiek: peperwortelperoksidase gebruik waterstofperoksied om die Amplex-substraat tot ’n fluoresserende produk, resorufien, te oksideer, met ’n stoïgiometrie van ongeveer een tot een. Peroksied uit die monster word fluoressensie in die detektor. Niks anders in die gebruiklike ROS-familie dryf daardie reaksie direk nie.
Die deurslaggewende voordeel is kalibrasie. ’n Noukeurige navorser toets bekende peroksiedstandaarde in dieselfde buffer, met dieselfde peroksidase- en substraatkonsentrasies, dieselfde inkubasietyd en dieselfde optiese instellings, en lees dan die monsters teen daardie kromme af. In die studie van geïsoleerde breinmitochondria waarop hierdie metode berus, het die outeurs presies dit gedoen deur bekende hoeveelhede peroksied aan die einde van elke toetslopie by te voeg. Die getalle word as tempo’s in pikomol per minuut per milligram proteïen gerapporteer, eerder as arbitrêre fluoressensie-eenhede. Dit is wat ’n gloed in ’n meting omskep.
Drie besonderhede uit daardie studie verdien om nagevolg te word. Eerstens het die outeurs die sein met katalase, wat peroksied afbreek, geverifieer. Die styging in fluoressensie wat deur metileenblou veroorsaak is, het opgehou toe katalase bygevoeg is. Dit het bevestig dat die sein peroksied was eerder as ’n optiese artefak. Tweedens het hulle beligting direk getoets deur die opwekkingsbundel met ’n sluiter af te skerm sodat monsters een agtste van die normale ligdosis ontvang het, en die sein het met slegs nege persent afgeneem. Meer as negentig persent van die peroksied wat hulle gerapporteer het, was onafhanklik van die meetlig. Derdens het hulle peroksiedverwydering afsonderlik met ’n elektrode gemeet en gevind dat die kleurstof sowel produksie verhoog as verwydering vertraag het. ’n Sonde wat slegs netto fluoressensie rapporteer, sou daardie twee effekte saamgevoeg het.
Die toets kan steeds op verskeie maniere faal, en metileenblou bring verskeie daarvan na vore. Die kleurstof absorbeer breedweg oor dieselfde rooi gebied waarin resorufien lig uitstraal. By hoë kleurstofkonsentrasies kan die monster dus sy eie sein deur binnefiltereffekte maskeer. Standaarde moet daarom dieselfde kleurstofkonsentrasie as die monsters bevat. Amplex Red kan ook op sy eie foto-oksideer, en sy produk resorufien kan aan fotoredokssiklusse deelneem wat superoksied en peroksied genereer. Dit is veral belangrik wanneer die eksperiment ook ’n fotosensitiseerder belig. Die praktiese oplossing is om die metileenbloumonsters eers te bestraal en dan aliquote met Amplex-reagense in die donker te toets, eerder as om kleurstof en sonde saam te belig. Laastens onderdruk superoksieddismutase nie bloot ’n Amplex-sein nie: die omskakeling van superoksied na peroksied kan dit verhoog. ’n SOD-kontrole wat fluoressensie verhoog, het nie gefaal nie. Dit het superoksied as ’n spesie vroeër in die reaksieketting geïdentifiseer.
DCFDA: ’n niespesifieke oksidasie-aanwyser
Die kombinasie van metileenblou en DCFDA is die bron van die meeste verwarring. DCFH-DA is ’n voorloper wat gebruik word om die sonde in selle te laai. Esterases binne die sel verwyder sy asetaatgroepe en laat niefluoresserende DCFH agter; oksidasie van DCFH lewer fluoresserende DCF. Die lys van stowwe wat dit oksideer, is lank: hidroksielradikale, peroksidase- en heemtussenprodukte, stikstofdioksied, hipochlorigsuur en radikale afkomstig van peroksinitriet. Waterstofperoksied alleen oksideer dit nie direk teen enige bruikbare tempo nie; peroksiedafhanklike fluoressensie vereis gewoonlik yster, heemproteïene of peroksidasechemie in die reaksieproses.
Die kritiek wat elke metode-afdeling behoort aan te haal, kom uit Kalyanaraman en kollegas se ontleding van DCFH as ’n sonde, soos saamgevat in die breinmitochondria-studie wat DCFDA om hierdie rede verwerp het. Hulle het getoon dat die kleurstof stadig reageer, met ongekarakteriseerde stoïgiometrie, sonder geldige kalibrasie, en met verbindings wat nie ROS is nie. Die sonde versterk ook wat dit meet: eenelektronoksidasie van DCFH lewer ’n DCF-radikaal wat met suurstof reageer om superoksied te vorm, wat deur dismutasie verdere peroksied lewer. Die meetproses skep gedeeltelik die chemie waaroor dit rapporteer.
Niks hiervan maak DCFDA nutteloos nie. Dit maak dit ’n siftingstoets, nie ’n identifikasie nie. ’n Styging in DCF-fluoressensie beteken dat oksidantafhanklike oksidasie van die sonde toegeneem het. Dit beteken nie dat peroksied toegeneem het nie, en dit beteken beslis nie dat totale ROS toegeneem het nie — ’n hoeveelheid wat geen enkele sonde meet nie. Vroeëre metileenblouwerk wat bo een mikromolêr op DCF-oksidasie gesteun het, het pro-oksidanteffekte gerapporteer, terwyl ander stelsels in dieselfde tydperk beskerming teen peroksiedgeïnduseerde seldood getoon het. Albei waarnemings kan vir dieselfde kleurstof in verskillende redokskontekste waar wees, en die DCF-resultaat alleen kan nie aandui watter oksidant die sein gelewer het nie. Die belang van die vroeëre breinmitochondria-werk is dat dit hierdie siftingstoets met ’n gekalibreerde peroksiedmeting vervang en die las direk vasgestel het: selfs een honderd nanomolêr kleurstof het peroksiedvrystelling verskeievoudig verhoog oor elke getoetste substraat en respiratoriese toestand.
DCFDA het nog ’n slaggat wat spesifiek met metileenblou verband hou. Die kleurstof is intens gekleurd en redoksaktief, en kan dus fluoressensie bleik, emissie uitdoof of die sonde onafhanklik van sellulêre ROS oksideer. ’n Selvrye kontrole met kleurstof plus sonde en geen selle nie is nie opsionele versiering nie. Dit is die eksperiment wat jou vertel of die kleurstof met die sonde reageer.
Spinvaslegging en suurstofopname: identiteit en vloed
Waar die fluoresserende sondes rapporteer dat iets oksideerbaars verskyn het, rapporteer elektronspinresonansie met spinvangers iets nader aan wat dit was. Die klassieke studie van metileenblou se fotochemie het ESR gebruik om die askorbaatradikaal uit kleurstof, askorbaat en lig op te spoor, en daarna peroksiedvorming in suurstofopname-eksperimente en ystergekataliseerde hidroksielradikaalvorming in spinvasleggingstoetse getoon. Elke tegniek het die vraag beantwoord wat die ander nie kon nie: ESR het die radikaal se identiteit verskaf, suurstofopname het die reaksievloed onafhanklik van enige fluoresserende sonde verskaf, en die kombinasie het getoon dat sowel singletsuurstof- as radikaalroetes in dieselfde beligte stelsel werksaam was.
Daardie resultaat uit 1984 lees steeds soos ’n waarskuwingsetiket. Met beligting en ’n reduseermiddel teenwoordig het die kleurstof peroksied gegenereer, en met yster teenwoordig het die stelsel die hidroksielradikaal geproduseer, die mees reaktiewe spesie in die groep. Die outeurs het dit met askorbaat in die oog verbind en onoordeelkundige oogheelkundige gebruik bevraagteken. Moderne lesers moet die toestande raaksien: lig plus reduseermiddel plus yster. Verwyder enigeen daarvan en die reaksieroete verswak of verdwyn.
Suurstofelektrodes verdien hul plek op ’n ander manier. ’n Clark-tipe elektrode meet netto suurstofverbruik. Dit bevestig dat kleurstofgedrewe redokschemie molekulêre suurstof verbruik en verskaf kinetiese data wat geen fluoressensie-artefak kan naboots nie. Dit identifiseer nie die produk nie. Peroksiedvorming, superoksiedvorming, watervorming en singletsuurstofverval verbruik almal suurstof. Vloed sonder identiteit is net so onvolledig soos identiteit sonder vloed; daarom kombineer die sterk studies die elektrode met ’n gekalibreerde peroksiedtoets of ’n vanger.
Waarom antioksidantresultate bots
Plaas die drie meetlesings langs mekaar en die oënskynlike teenstrydighede in die metileenblouliteratuur word verklaar deur metodeverskille plus drie biologiese feite.
Eerstens is die kleurstof sowel ’n elektronoordraer as ’n peroksiedbron. Deur elektrone weg te lei van die respiratoriese plekke waar suurstof andersins superoksied sou word, kan dit een ROS verlaag terwyl sy gereduseerde vorm suurstof direk tot peroksied reduseer en ’n ander verhoog. ’n Laboratorium wat met mitochondriale redokschemie en die kleurstof se omleidingsrol werk, moet dus sonde-afhanklike antwoorde verwag: ’n superoksiedsensitiewe meetlesing daal terwyl ’n peroksiedmeetlesing in dieselfde kuvet styg.
Tweedens is peroksied by lae dosisse ’n sein, nie net ’n bron van skade nie. Die studie van muisbreinmitochondria wat op die vroeëre werk gevolg het, het peroksiedgenerering vanaf so min as vyftig nanomolêr kleurstof sonder mitochondriale DNA-letsels by terapeutiese vlakke gevind, met beskerming teen rotenoongeïnduseerde letsels ná voorbehandeling. Eers by een honderd mikromolêr, ver bo die terapeutiese reeks, het die kleurstof sekere DNA-fragmente beskadig, en rooi lig plus twintig mikromolêr kleurstof het singletsuurstof geproduseer wat al die getoetste fragmente beskadig het. Die voorgestelde meganisme is hormeties: geringe peroksiedproduksie aktiveer Nrf2-gekoppelde antioksidantverdediging en mitochondriale biogenese, sodat ’n korttermyn-pro-oksidantlesing ’n langertermyn-antioksidantuitkoms voorafgaan. ’n Toets wat ná een uur afgelees word en ’n toets wat ná een dag afgelees word, kan verskil omdat die biologie intussen verander het.
Derdens bepaal lig watter molekule hoegenaamd teenwoordig is. Beligting demetileer die kleurstof en vorm Azure B en verwante produkte, en die mikroskooplamp bo ’n skottel is genoeg om dit te fotosensitiseer. Eksperimente in die donker en onder beligting is verskillende eksperimente, en die afdeling oor kontroles vir beligting en kleurstofhantering in enige protokol moet hulle so behandel.
’n Minimum stel kontroles, en hoe om enige aanspraak te lees
Die vergelyking hieronder is die oorspronklike verwysingsmateriaal vir hierdie artikel. Voordat jy enige metileenblou-ROS-resultaat aanvaar, kyk watter ry die outeurs ingevul en watter hulle oorgeslaan het.
| Kontrole | Wat dit uitsluit | Hoe om dit uit te voer |
|---|---|---|
| Donker teenoor gedefinieerde beligting | Verwarring tussen grondtoestand-redokseffekte en fotochemie | Dieselfde kleurstof, dieselfde matriks, een proefarm in die donker, een onder ’n gemete ligdosis |
| Sonde plus lig, geen kleurstof nie | Sondefotochemie | Belig die sonde alleen; enige sein is die artefakbasislyn |
| Kleurstof plus lig, geen selle of substraat nie | Verwarring tussen sellulêre ROS en ROS eie aan die kleurstof | Selvrye matriks; bepaal wat die kleurstof op sy eie genereer |
| Katalase | Nieperoksiedsein in ’n Amplex-toetslopie | Die sein behoort te daal; let daarop dat beligte kleurstof katalase self kan beskadig |
| SOD | Superoksieddeelname | ’n Styging in die Amplex-sein dui op superoksied vroeër in die reaksieketting, nie toetsmislukking nie |
| Ystercheleerder soos deferoksamien | Fenton-tipe hidroksielchemie | Toets of redoksaktiewe yster die DCFH- of vangersein lewer |
| Peroksiedstandaarde in die volledige matriks | Ongekalibreerde fluoressensie | Bekende peroksiedtoevoegings met identiese kleurstofkonsentrasie en optiese instellings |
Hieruit volg ’n praktiese leesreël. Amplex met peroksidase, gekalibreer en met ’n katalasekontrole, is bewys oor peroksied. DCFDA is bewys oor niespesifieke sonde-oksidasie en niks meer nie. Spinvaslegging met radikaalvangerkontroles is bewys oor radikaalidentiteit. Suurstofopname is bewys oor vloed. ’n Sin wat meer beweer as wat sy toets kan ondersteun, hoe selfversekerd ook al geskryf, is ’n sin oor die sonde, nie oor die kleurstof nie. Verwante besprekings van dosisafhanklikheid en die hormetiese reeks, mitochondriale elektronvloei, toetsinterferensie in gekleurde monsters en mikroskopiese beligtingsartefakte brei op elk van hierdie punte uit, en elkeen bly geldig sodra sy plekhouerverwysing vervang word.