
Artikel
Wanneer metileenblou inmeng met die eksperiment wat gebruik word om dit te meet
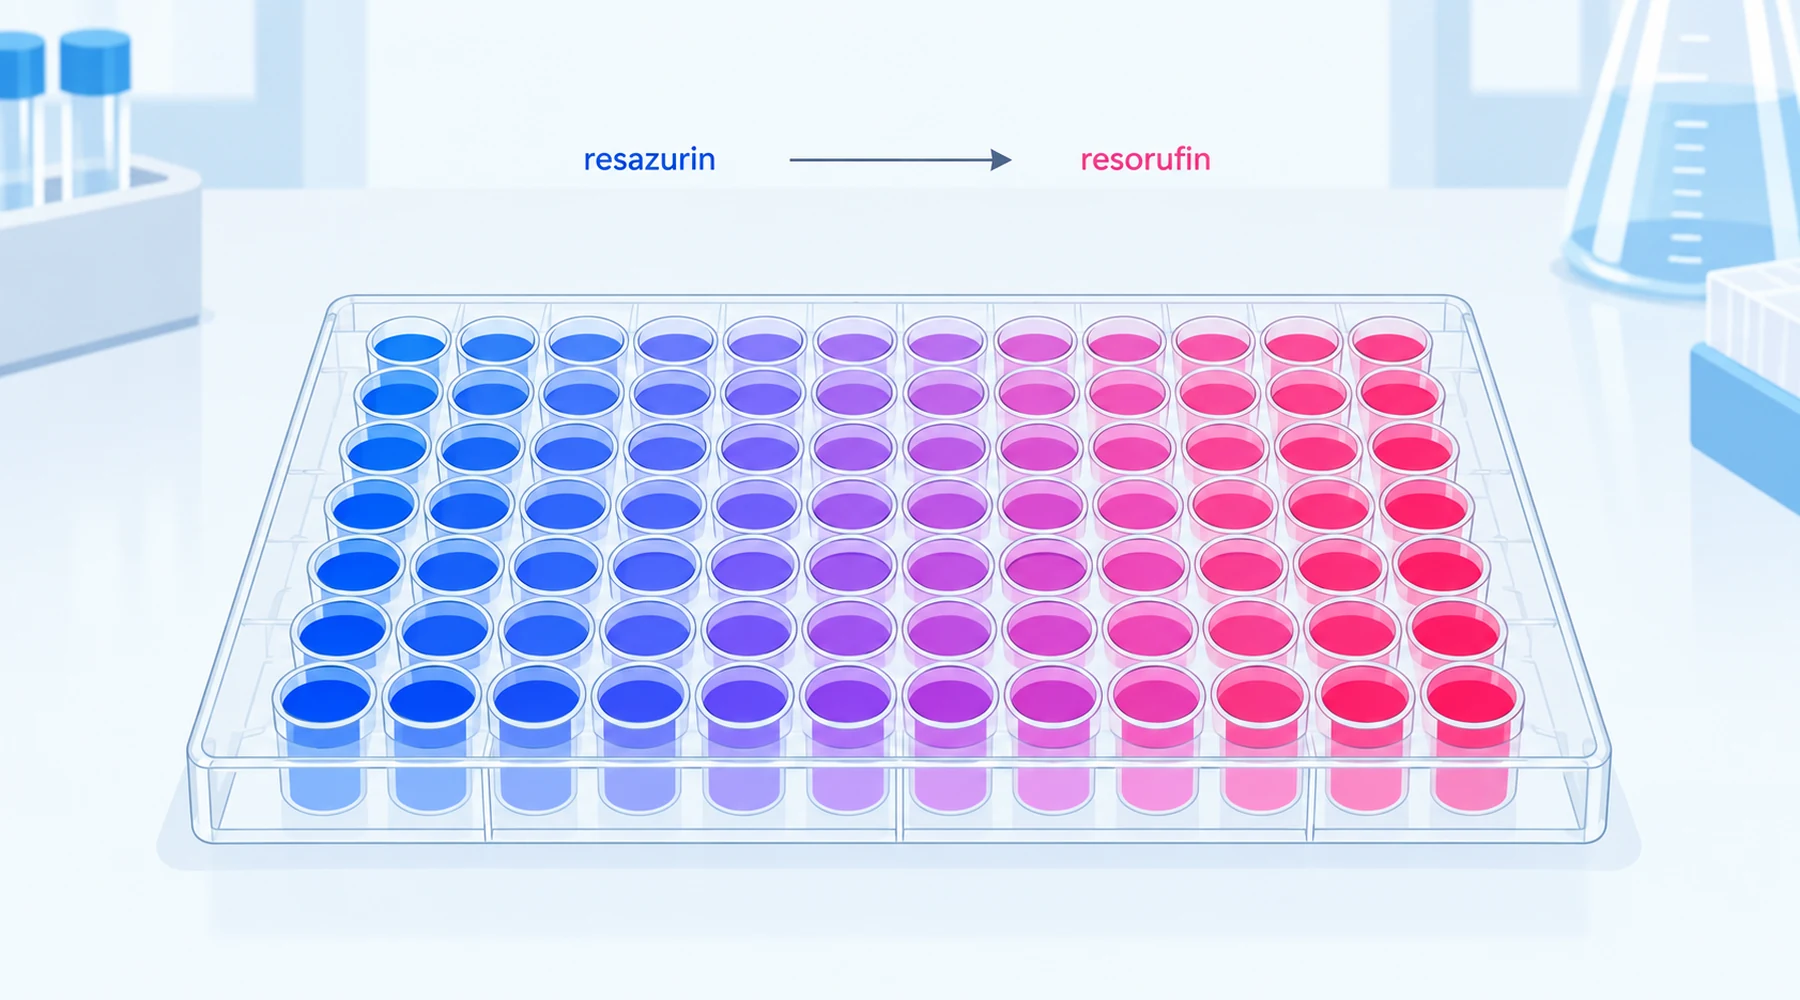
Een laboratorium kweek sebravisembrio’s in metileenblou teen die standaardkonsentrasie vir aanhouding, en meet dan metabolisme op twee maniere. Op dag een toon ’n Seahorse-ontleder dat suurstofverbruik toeneem. Op dae vier en vyf toon ’n Alamar Blue-plaat dat energieverbruik afneem. Dieselfde kleurstof, dieselfde vislyn, teenoorgestelde gevolgtrekkings. Dan kom die onopvallende kontrole: putjies met metileenblou plus Alamar Blue-reagens en glad geen visse nie lewer ook ’n swakker ligsein as die reagens alleen. ’n Deel van die resultaat was biologie. ’n Deel daarvan was die kleurstof wat sy eie eksamen nasien. Hierdie onderskeid, gedokumenteer in ’n 2025-studie in Communications Biology oor metileenblou in ontwikkelende sebravisse, is die tipiese patroon van metileenblou-toetsinterferensie. Dit is ook waarom redoksaktiewe kleurstowwe kontroles vereis wat gewone toetsverbindings nie nodig het nie.
Wat ’n resasurientoets werklik aandui
Alamar Blue is ’n handelsnaam vir ’n resasurienoplossing. Metileenblou-interferensie met Alamar Blue en metileenblou-interferensie met resasurientoetse beskryf dus dieselfde botsing. Geoksideerde resasurien is blou en fluoresseer skaars. Metabolies aktiewe selle reduseer dit tot resorufien, wat pienk is en sterk fluoresseer by ongeveer 560 nm vir eksitasie en 590 nm vir emissie, met bruikbare reekse van ongeveer 530 tot 570 nm vir eksitasie en 580 tot 610 nm vir emissie volgens die vervaardiger se mikroplaatprotokol. Wanneer reduksie verder gaan, word resorufien omgeskakel na dihidroresorufien, wat swak fluoresseer. Te veel selle of ’n te lang inkubasietyd laat die kalibrasiekurwe dus aan die boonste punt afwaarts buig.
Die elektrone kom hoofsaaklik van NADH en NADPH deur sellulêre reduktases en diaforases in die sitosol, mikrosome en mitochondria. Die meetresultaat weerspieël dus ’n geïntegreerde reduksievermoë, nie ’n telling van lewensvatbare selle of ’n mitochondriale meting nie. ’n Hoër sein kan meer selle, meer reduksievloed per sel, of albei beteken. ’n Verbinding wat NADH herlei, verander die sein sonder om ’n enkele sel dood te maak. Hou daardie sin byderhand, want die herleiding van NADH is metileenblou se daaglikse werk.
Twee interferensieroetes, een laer sein
Metileenblou verwring ’n resasurienmeting deur twee onafhanklike roetes, en enigeen van die twee verlaag op sy eie die skynbare fluoressensie.
Roete 1 is opties. Metileenblou absorbeer sterk in die rooi gebied, met sy monomeerband naby 660 tot 665 nm en ’n dimeerskouer naby 607 tot 610 nm waarvan die stert terugstrek na die resorufienemissie rondom 590 nm. Kleurstof in die ligpad absorbeer ’n deel van die eksitasielig en herabsorbeer ’n deel van die uitgestraalde fluoressensie. Hierdie binnefiltereffek verswak die ligsein uit die putjie selfs wanneer resorufienproduksie onveranderd bly. Die spektrum verskuif ook met die kleurstof se toestand: ’n faktorontleding van metileenblouspektra in water en siklodekstrienoplossings onderskei monomeer, dimeer en gasheer-gaskompleks as drie spesies met verskillende ekstinksiekoëffisiënte van 500 tot 700 nm. Die grootte van die optiese fout verander dus met konsentrasie, aggregasie en binding. Onderskei in die eksperiment gewone optiese verswakking van molekulêre fluoressensie-uitdowing met die herwinningstoets vir ’n bygevoegde standaard wat hieronder beskryf word, aangesien die regstelling verskil.
Roete 2 is redokskompetisie. Geoksideerde metileenblou aanvaar elektrone van NAD(P)H om kleurlose leukometileenblou te vorm. Molekulêre suurstof heroksideer dit tot die blou vorm, terwyl gereduseerde suurstofprodukte, waaronder waterstofperoksied, gevorm word. Elke omloop van hierdie siklus verbruik reduksie-ekwivalente wat andersins resasurien sou reduseer, en verbruik suurstof terwyl peroksied as neweproduk gevorm word. ’n Laer Alamar Blue-sein kan dus beteken dat elektrone deur die metileenblousiklus beweeg het eerder as om resorufien te vorm. Op die plaat lyk dit soos verlaagde metabolisme, ongeag wat die selle gedoen het. Dieselfde chemie verklaar ’n spieëlbeeldige slaggat in suurstofinstrumente: gereduseerde kleurstof wat deur suurstof heroksideer word, dryf chemiese suurstofverbruik aan sonder enige biologie. Kleurstofblanko’s hoort dus ook in respirometrie, soos die vergelyking van suurstof-, ATP- en membraanpotensiaalmetings vir die mitochondriale geval uiteensit.
Veranderde seine en veranderde biologie kan albei werklik wees
Die sebravisstudie is waardevol juis omdat dit die maklike óf-óf-benadering verwerp. Die biologie was werklik: basale suurstofverbruik het in 1-dag-oue embrio’s by albei aanhoudingskonsentrasies toegeneem, ATP-gekoppelde respirasie het by die laer konsentrasie toegeneem, membraanpotensiaal wat met die JC-10-sonde gemeet is, het op dag twee toegeneem, en transkripte van mitochondriale komplekse het op dae een en vier afgeneem. Die artefak was ook werklik: visse wat drie keer voor die Alamar Blue-stap gewas is, het steeds sigbare blou kleuring in die kop, mond en reukstreek gehad, en selvrye putjies met kleurstof plus reagens het op hul eie ’n klein maar beduidende hoeveelheid fluoressensie verloor. Die afnames in die organismes se Alamar Blue-sein op dae vier en vyf was groter as die selvrye effek. Die outeurs het die uitkoms dus vertolk as ’n werklike metaboliese verandering wat deur ’n effens verwronge lens waargeneem is. Dit is die korrekte denkmodel. ’n Redokssiklusvormer wat ook blou ligabsorberende kleurstof is, sal gewoonlik die roete wat bestudeer word en die verslaggewerchemie tegelyk versteur. Die kontroles se taak is om elke bydrae te kwantifiseer, nie om een daarvan as denkbeeldig af te maak nie. ’n Verwante les kom uit die werk oor siklodekstrienbinding: toe ’n gasheermolekule die kleurstof vasgevang het, het kleuring en aktivering van glukose-opname saam afgeneem. Dit het daarop gedui dat die metaboliese effek direkte interaksie met die kleurstof vereis, eerder as diffuse redoksruis. Om ’n fisiese kleurstofmeting met ’n funksionele meting te korreleer, is presies die stap wat meganisme van artefak onderskei. Die gids vir die lees van kleurstofgebaseerde metaboliese aansprake ontwikkel hierdie benadering verder.
Die kontroles wat hulle onderskei
Voer hierdie kontroles uit voordat jy enige metileenblouresultaat van ’n resasurienplaat vertolk. Konsentrasies, medium, inkubasietyd en beligting moet presies met die sellulêre eksperiment ooreenstem, want elke roete hierbo hang daarvan af.
| # | Kontrole | Wat dit opspoor | Kriterium om te slaag | Indien dit misluk |
|---|---|---|---|---|
| 1 | Medium plus kleurstof, geen reagens, geen selle | Kleurstofagtergrond by die toetsgolflengtes | Agtergrond klein teenoor sellulêre sein | Trek blankowaardes per konsentrasie af, nooit een algemene blankowaarde nie |
| 2 | Medium plus reagens, geen kleurstof, geen selle | Spontane reagensreduksie | Lae, stabiele basislyn gedurende die inkubasie | Verkort inkubasie, verander medium, of aanvaar ’n hoër onderste grens |
| 3 | Medium plus kleurstof plus reagens, geen selle | Direkte kleurstof-reagenschemie | Dieselfde as kontrole 2 binne die ruisvlak | Rapporteer die afwyking; moenie dit aan selle toeskryf nie |
| 4 | Resorufienstandaard bygevoeg aan draermiddelputjies teenoor kleurstofputjies | Optiese verswakking of fluoressensie-uitdowing | Gelyke herwinning in albei matrikse | Kwantifiseer die verlies per kleurstofdosis en korrigeer, of verander die meetmetode |
| 5 | Gewaste teenoor ongewaste selvrye oordrag | Oorblywende kleurstof ná jou wasstappe | Was verwyder die selvrye effek | Kleurstof wat opgeneem is, bly agter; kontroles 3 en 4 geld dus steeds |
Kontroles 3 en 4 is die paar wat die meeste artikels oorslaan en wat die meeste metileenblouartikels nodig het. Kontrole 3 vang chemie op, kontrole 4 vang optika op, en saam begrens hulle die artefak voordat enige biologiese aanspraak gemaak word.
Ortogonale metings, elk met sy eie voorbehoude
Geen enkele tweede toets bevestig die eerste een nie. Elke ortogonale meting ontkom aan een roete maar bly aan ’n ander blootgestel. Kies dus ’n kombinasie waarvan die blindekolle nie oorvleuel nie. Die toetskeusematriks vir redoksaktiewe verbindings verduidelik die logika van sulke parings, en die gids vir membraanpotensiaalsondes behandel die voorbehoude oor fluoressensie in besonderhede.
Seahorse-suurstofverbruik volg elektrone na suurstof eerder as na resorufien, wat die verslaggewerchemie heeltemal omseil. Die kleurstof verbruik egter ook suurstof chemies, dus is kleurstofblanko’s sonder mitochondria in volledige medium noodsaaklik. ATP-lusiferasetoetse gebruik bioluminessensie eerder as resorufienfluoressensie en vermy dus sowel die optiese oorvleueling as die reduktasekompetisie, maar meet die balans van die ATP-poel eerder as die sintesevloed. Membraanpotensiaalsondes soos TMRM of JC-10 bepaal of die ladingsgradiënt behoue bly, maar hulle fluoresseer in dieselfde sigbare gebied waarin die kleurstof absorbeer. Oorblywende blou kleuring bemoeilik hulle dus ook, en hulle vereis blanko’s met slegs kleurstof by elke kleurstofdosis. Transkripmetings van subeenhede van respiratoriese komplekse vermy optika heeltemal en integreer oor ure, wat die plaatmetings op ’n tydskaal van minute aanvul.
Die minimum geloofwaardige pakket vir ’n metaboliese aanspraak oor metileenblou is dus: ’n resasurienresultaat met kontroles 1 tot 4, plus een nie-resasurieneindpunt wat op ’n ander fisiese beginsel berus, plus ’n uitdruklike standpunt oor of die verandering selgetal, reduksievloed per sel, of albei weerspieël. Enigiets minder laat die leser nie toe om ’n minder aktiewe metabolisme van ’n swakker ligsein uit die putjie te onderskei nie.
Werkblad vir interferensiebeheer
Kopieer hierdie werkblad in die laboratoriumnotaboek vir elke eksperiment wat die kleurstof met ’n redoksverslaggewer kombineer. Dit is die oorspronklike hulpmiddel vir hierdie artikel: vul een ry per kleurstofkonsentrasie in.
A. Seinroetes. Teken vir elke konsentrasie die volgende aan: die verwagte monomeer- teenoor dimeerregime (lae mikromolêre konsentrasies teenoor tientalle mikromolêr en hoër), die absorbansie van die finale putjie-inhoud by 590 nm in ’n selvrye putjie, en die persentasie herwinning van die bygevoegde resorufienstandaard. Indien herwinning onder ongeveer 90 persent daal, behandel alle fluoressensiewaardes by daardie dosis as opties verswak, nie as biologies presies nie.
B. Chemiekontrole. Teken die selvrye kleurstof-plus-reagensfluoressensie as ’n persentasie van die basislyn met slegs reagens by elke meettyd aan. Indien die afwyking met tyd toeneem, reageer die kleurstof tydens die toets met die verslaggewerstelsel, en metings slegs by die eindpunt sal misleidend wees. Oorweeg kinetiese metings of ’n ander verslaggewer.
C. Biologiese kruiskontrole. Noem die ortogonale meting wat vir hierdie lopie gekies is, sy eie kleurstofblanko, en die voorspelde uitkoms indien die resasurienresultaat werklik is. ’n Werklike metaboliese afname behoort ’n onafhanklike eindpunt in ’n ooreenstemmende rigting te verander. Indien die ortogonale eindpunt nie ooreenstem nie, vertrou nog nie een van die resultate nie en herontwerp die eksperiment eerder as om die twee se gemiddelde te neem.
D. Gevolgtrekkingsin. Skryf een sin in hierdie vorm: by die vermelde dosis en stadium het die resasuriensein met die vermelde hoeveelheid verander, waarvan die vermelde hoeveelheid ’n selvrye artefak is, en die ortogonale eindpunt (stem ooreen of stem nie ooreen nie). Indien enige inskrywing leeg is, is die eksperiment nie voltooi nie.
Metileenblou bly ’n nuttige metaboliese sonde, en die sebraviswerk toon werklike mitochondriale effekte by dosisse wat baie fasiliteite daagliks in die drein afgooi. Die kleurstof dring bloot daarop aan om gemeet te word met instrumente wat dit nie kan beïnvloed nie. Gee dit putjies met slegs kleurstof, ’n herwinningstoets vir ’n bygevoegde standaard en een meting wat op ander fisika berus, en die interferensie hou op om ’n slaggat te wees en word ’n kwantifiseerbare hoeveelheid.