
Член
Метиленско сино и азотен моноксид: NOS, cGMP и васкуларна сигнализација
Прашањето звучи едноставно: дали метиленското сино го инхибира азотниот моноксид? Во лабораторијата, одговорот се разделува на четири одделни прашања, а секое бара различен експериментален тест. Нивното мешање е главната причина зошто текстовите за метиленското сино и азотниот моноксид звучат уверливо, но остануваат нејасни.
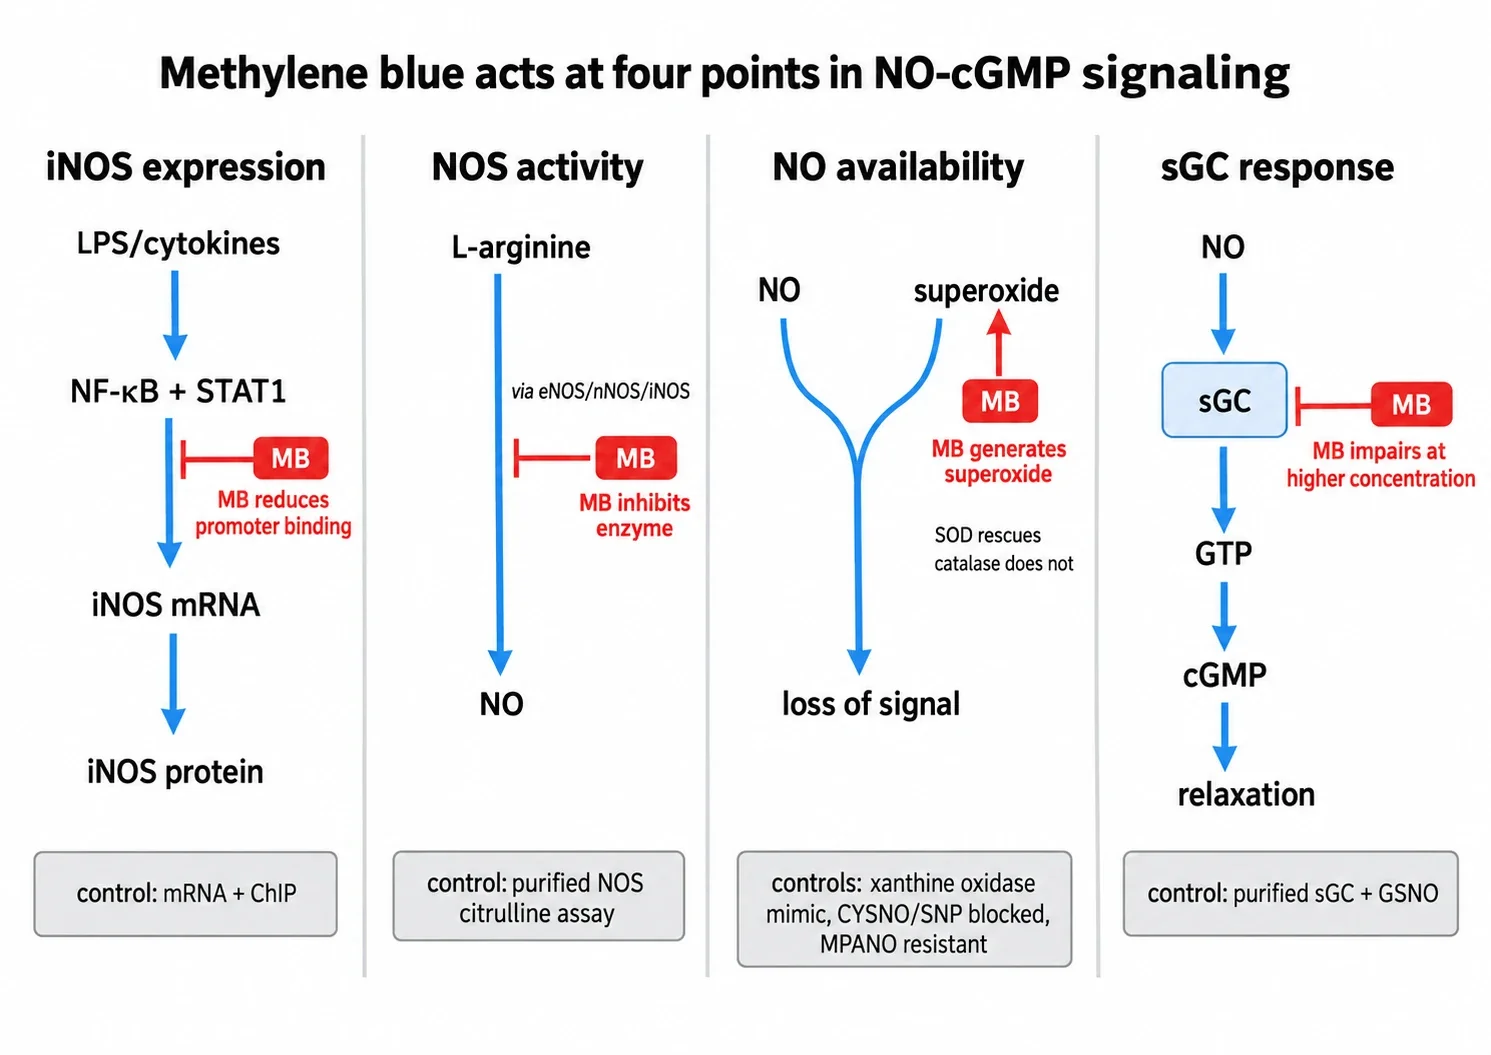
Замислете го сигналот на азотниот моноксид како синџир со четири алки. Се транскрибира ген за да се создаде синтаза на азотен моноксид. Ензимот го претвора аргининот во азотен моноксид. Гасот дифундира до својата цел пред да реагира со нешто друго. Растворливата гванилат циклаза го детектира и создава цикличен GMP. За метиленското сино се објавени ефекти врз секоја алка, но доказите потекнуваат од различни експериментални препарати, различни концентрации и различни изоформи. Резултат кај една алка не докажува дејство врз друга.
Канонскиот синџир, објаснет едноставно
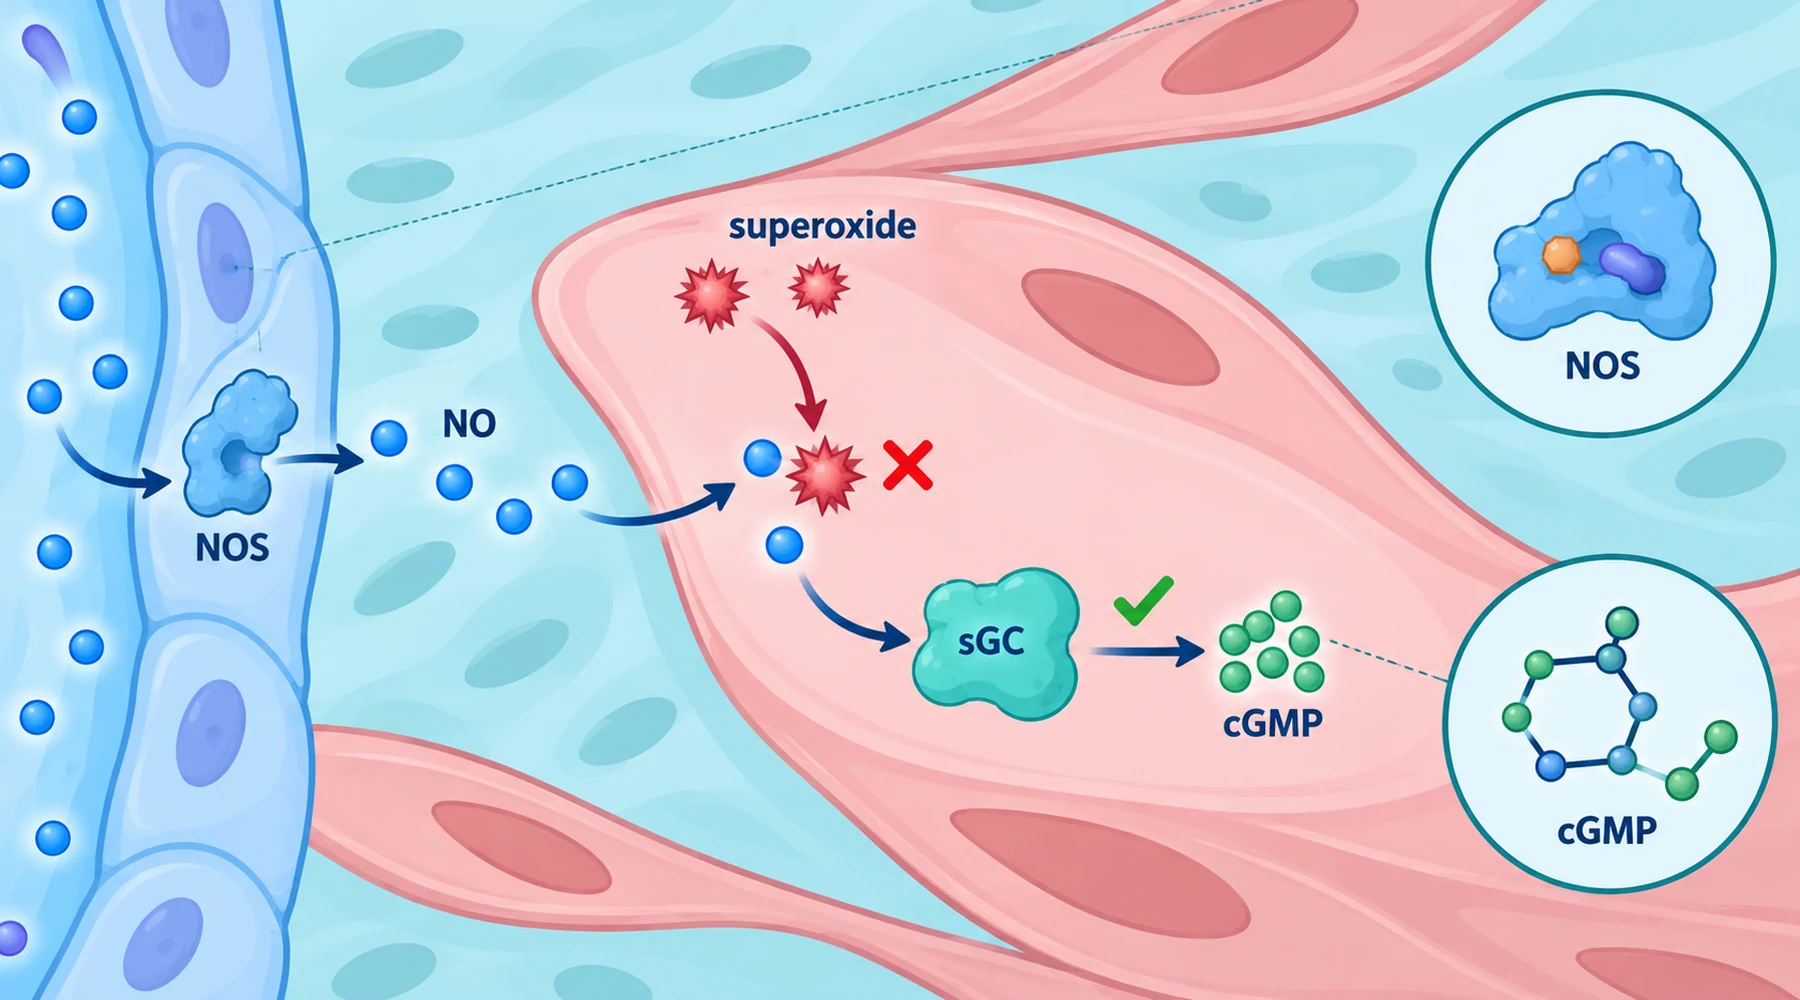
Во ѕидот на крвниот сад, стандардната низа се одвива вака. Дразба дејствува врз ендотелна клетка. Ендотелната синтаза на азотен моноксид, наречена eNOS или NOS3, создава мал пулс на азотен моноксид. Гасот дифундира во соседната мазномускулна клетка, се врзува за хемот со редуцирано железо во растворливата гванилат циклаза и го забрзува претворањето на GTP во цикличен GMP. Цикличниот GMP ја активира протеин киназата G, се менува регулацијата на калциумот и мускулот се релаксира.
Постои и втор синџир што треба да се разгледува одделно. За време на инфекција или изложување на цитокини, клетките го транскрибираат генот за друг ензим, индуцибилната синтаза на азотен моноксид, или iNOS, наречена и NOS2. Таа создава поголеми и подолготрајни текови на азотен моноксид од eNOS. Третата изоформа, невронската NOS или nNOS, припаѓа на уште поинаков контекст. Кога во труд се споменува синтаза на азотен моноксид без да се наведе изоформата, застанете и проверете која била измерена. Прегледот за тоа како метиленското сино ги пренесува електроните ја нагласува истата поента за редокс-целите воопшто: преносникот не дејствува самостојно, а партнерот на секој крај го одредува исходот.
Измерениот цикличен GMP е исто така интегриран показател, а не директен ензимски тест. Неговото ниво ја одразува синтезата преку циклазата намалена за разградувањето преку фосфодиестеразите, особено PDE5 во васкуларниот мазен мускул. Затоа, падот на цикличниот GMP значи дека помалку сигнал стигнал до детекторот. Сам по себе, тој не покажува која алка откажала.
Алка 1: се создава помалку од ензимот iNOS
Во глувчешки макрофаги стимулирани со бактериски липополисахарид, интерферон гама или со двата, метиленското сино го спречило очекуваното зголемување на протеинот iNOS и силно ја потиснало информациската РНК за iNOS во експериментите за транскрипција во макрофаги. Особено важно е она што не се променило. Разградувањето на инхибиторот I капа B алфа, фосфорилацијата на NF капа B и STAT1 и преместувањето на тие фактори во јадрото останале во голема мера непроменети. Се намалило нивното врзување за ДНК, што било потврдено со хроматинска имунопреципитација која покажала намалена зафатеност на промоторот на iNOS.
Тоа е ефект врз регулацијата на генот, пред чекорот што ја одредува количината на ензимот, а не акутна блокада на веќе постоечки ензим. Тој припаѓа на воспалителната сигнализација, каде што транскрипциските фактори мора да се врзат за промотор пред да се појави протеинот. Не кажува ништо директно за конститутивната eNOS во крвен сад во мирување и треба да се опишува во тие рамки.
Алка 2: постоечкиот ензим NOS работи побавно
Една студија кај стаорци испитувала друго ниво. Будни машки стаорци примиле липополисахарид интравенски, а три часа подоцна примиле или физиолошки раствор или метиленско сино во доза од 3 mg на kg интравенски. Активноста на синтазата на азотен моноксид во медиобазалниот хипоталамус била измерена преку претворањето на обележан аргинин во цитрулин во студијата за активноста на хипоталамичната NOS. Само стресот со физиолошки раствор индуцирал извесна активност независна од калциум, а липополисахаридот ја зголемил до околу десет пати над контролното ниво. Метиленското сино ги елиминирало двете индуцирани компоненти. Конститутивната активност зависна од калциум не се променила во тоа ткиво, при таа доза и во таа временска точка.
Прочитајте го резултатот токму како што е наведен: потисната измерена активност од типот iNOS во тие услови. Тоа не е мерење на генската експресија и не е доказ за постојана селективност кон iNOS во однос на eNOS или nNOS. Истражувањата со прочистени ензими дополнително ја нагласуваат потребата од претпазливост. Во директни тестови со прочистена синтаза на азотен моноксид, метиленското сино целосно го блокирало создавањето цитрулин при 30 микромоларна концентрација, со концентрација за половична инхибиција близу 5.3 микромоларна без супероксид дисмутаза и 9.2 микромоларна со неа, како што е наведено во споредбата на прочистена NOS и гванилат циклаза. Друга студија со прочистена nNOS укажала на оксидација на хемот врзан за ензимот. Практичната поука е дека директната инхибиција на NOS навистина се јавува во изолирани системи, но резултатот од хипоталамусот не може да се прошири во општо тврдење дека метиленското сино секаде ги поштедува сите конститутивни форми на NOS.
Алка 3: азотниот моноксид се губи пред да пристигне
Најјасниот доказ дека нешто друго освен блокада на ензимот може да го објасни падот на цикличниот GMP доаѓа од култивирани мазномускулни клетки од белодробните артерии на зајак. Експерименталниот дизајн целосно ја заобиколил ендогената NOS со директно додавање донори на азотен моноксид, а потоа испитал дали метиленското сино и натаму го потиснува одговорот на цикличниот GMP во студијата за супероксид во васкуларниот мазен мускул.
Биле тестирани три донори во концентрации од 1 до 100 микромоларни: S-нитрозо-L-цистеин, натриум нитропрусид и стабилен деаминиран аналог наречен MPANO. Сите го зголемиле цикличниот GMP за приближно 1.5 до 12 пати. Метиленското сино при 10 микромоларна концентрација ги инхибирало одговорите на првите два за 51 до 100 проценти, а одговорот на MPANO го оставило непроменет. Ако метиленското сино само го блокирало каталитичкото место на циклазата, таа селективност кон донорите би била тешко објаснива, бидејќи сите три дејствуваат преку истиот ензим понатаму во сигналниот пат.
Потоа три контроли го поврзале механизмот со супероксидот. Прво, создавањето екстрацелуларен супероксид со ксантин и ксантин оксидаза го репродуцирало истиот образец: одговорите на CYSNO и нитропрусид биле блокирани, а одговорот на MPANO бил поштеден. Второ, метиленското сино предизвикало создавање супероксид од мазномускулните клетки зависно од дозата и времето, измерено преку редукција на цитохром c. Трето, супероксид дисмутазата целосно ја спречила инхибицијата, додека каталазата не ја спречила, што укажува на супероксидот, а не на водородниот пероксид, како непосредно одговорен хемиски вид во тој препарат.
Вреди да се опише и верзијата на експериментот со кокултура, бидејќи таа просторно го лоцира ефектот. Ендотелни клетки на покривни стакленца биле краткотрајно кокултивирани со мазномускулни клетки, при што базално ослободениот ендотелен фактор го зголемил цикличниот GMP во мазниот мускул за три до осум пати. Претходното третирање на кој било од двата клеточни оддели со метиленско сино го намалило тој сигнал, а супероксид дисмутазата делумно го вратила сигналот намален со претходното третирање на ендотелните клетки. Со други зборови, метиленското сино воопшто не мора да дејствува во мазномускулната клетка што го детектира сигналот. Може да го намали сигналот со отстранување на гласникот при неговото пренесување. Водичот за читање истражувања за метиленско сино го третира ова како општо правило: наведете го одделот во кој се случила интервенцијата пред да именувате молекуларна цел.
Би било погрешно ова да се нарече инхибиција на NOS. За донорите да дејствуваат не бил потребен никаков чекор со синтаза, а сепак сигналот се намалил.
Алка 4: самиот детектор реагира послабо
Директни ефекти врз растворливата гванилат циклаза постојат, но концентрациите се важни. Во горенаведената споредба со прочистени ензими, за половична инхибиција на циклазата стимулирана со азотен моноксид биле потребни околу 60 микромоларна концентрација на метиленско сино, наспроти половичната инхибиција на NOS близу 5 до 9 микромоларна концентрација. Дури и 1 милимоларна концентрација дала само делумна максимална блокада. Тоа е разлика од приближно шест до единаесет пати. Затоа, клеточен експеримент со ниска микромоларна концентрација што го намалува цикличниот GMP не може да се означи како селективна инхибиција на циклазата само врз основа на вредноста на цикличниот GMP.
Една подоцнежна редокс-студија додала уште една причина за претпазливост: метиленското сино ја деактивирало циклазата активирана со азотен моноксид преку механизам различен од едноставната оксидација на железото во хемот со воздух. Значи, функцијата на детекторот може да биде нарушена, но хемискиот механизам не е целосно разјаснет. Разликата во концентрациите значи дека при изложување на ниски микромоларни концентрации прво треба да се исклучат ефектите преку супероксид и NOS. Тука припаѓа и контролата на фосфодиестеразите. Ако разградувањето не било измерено или блокирано, намаленото натрупување цикличен GMP е во согласност со помала синтеза, побрзо разградување или со двете.
Зошто ова не се сведува на едно тврдење за крвниот притисок
Секоја алка била утврдена во различен систем. Транскрипцијата во макрофаги не е исто што и ензимската активност во хипоталамусот. Активноста во хипоталамусот по липополисахарид не е исто што и ендотелниот тонус во мирување. Базално ослободениот ендотелен фактор во кокултура не е исто што и вазодилатацијата стимулирана со агонист. Култивираните клетки од белодробни артерии при 10 микромоларна концентрација на метиленско сино не се човечки крвоток. Нивното сведување на тврдење како „метиленското сино го зголемува крвниот притисок со блокирање на азотниот моноксид“ ги отфрла токму разликите што контролите биле осмислени да ги зачуваат.
Три проверки го одржуваат објаснувањето верно на доказите. Прво, наведете ја изоформата: eNOS за васкуларниот тонус во мирување, iNOS за индуцираниот воспалителен тек на азотен моноксид, nNOS за невронски контексти и за некои експерименти со прочистени ензими. Второ, наведете како се обезбедува сигналот на азотниот моноксид: ендогена синтеза, базално ослободување од ендотелот или конкретен донор како CYSNO, нитропрусид или MPANO, бидејќи стабилниот донор бил отпорен на метиленското сино, додека лабилните не биле. Трето, наведете ја концентрацијата и контролата што го враќа одговорот: враќањето со супероксид дисмутаза укажува на улога на супероксидот, неуспехот на каталазата зборува против улога на водородниот пероксид во тој препарат, имитирањето со ксантин оксидаза покажува дека тој механизам е доволен, а тестовите со прочистени ензими ги одвојуваат директните ефекти врз катализата од загубите при пренесувањето.
Кратката синтеза е следнава. Метиленското сино е подобро да се разгледува како супстанција што ја нарушува сигнализацијата од азотен моноксид до цикличен GMP на повеќе места, отколку како селективен блокатор на циклазата. Во зависност од препаратот и концентрацијата, може да го намали врзувањето на транскрипциските фактори за iNOS, директно да ги инхибира ензимите NOS, да ја намали достапноста на азотниот моноксид преку создавање супероксид и да ја наруши функцијата на циклазата активирана со азотен моноксид. Улогата на сигнализацијата преку цикличен GMP во васкуларните студии и споредбата на донорите на азотен моноксид што се користат во клеточни тестови обработуваат по една од тие гранки подетално, а методите за одвојување на редокс-ефектите од ензимските ефекти објаснуваат зошто супероксид дисмутазата, каталазата и контролата со стабилен донор толку често се појавуваат заедно во оваа литература.
Ниска вредност на цикличниот GMP по метиленско сино покажува дека синџирот е прекинат. Само контролите покажуваат која алка се прекинала.