
Член
Мерење на реактивните кислородни видови во експерименти со метиленско сино
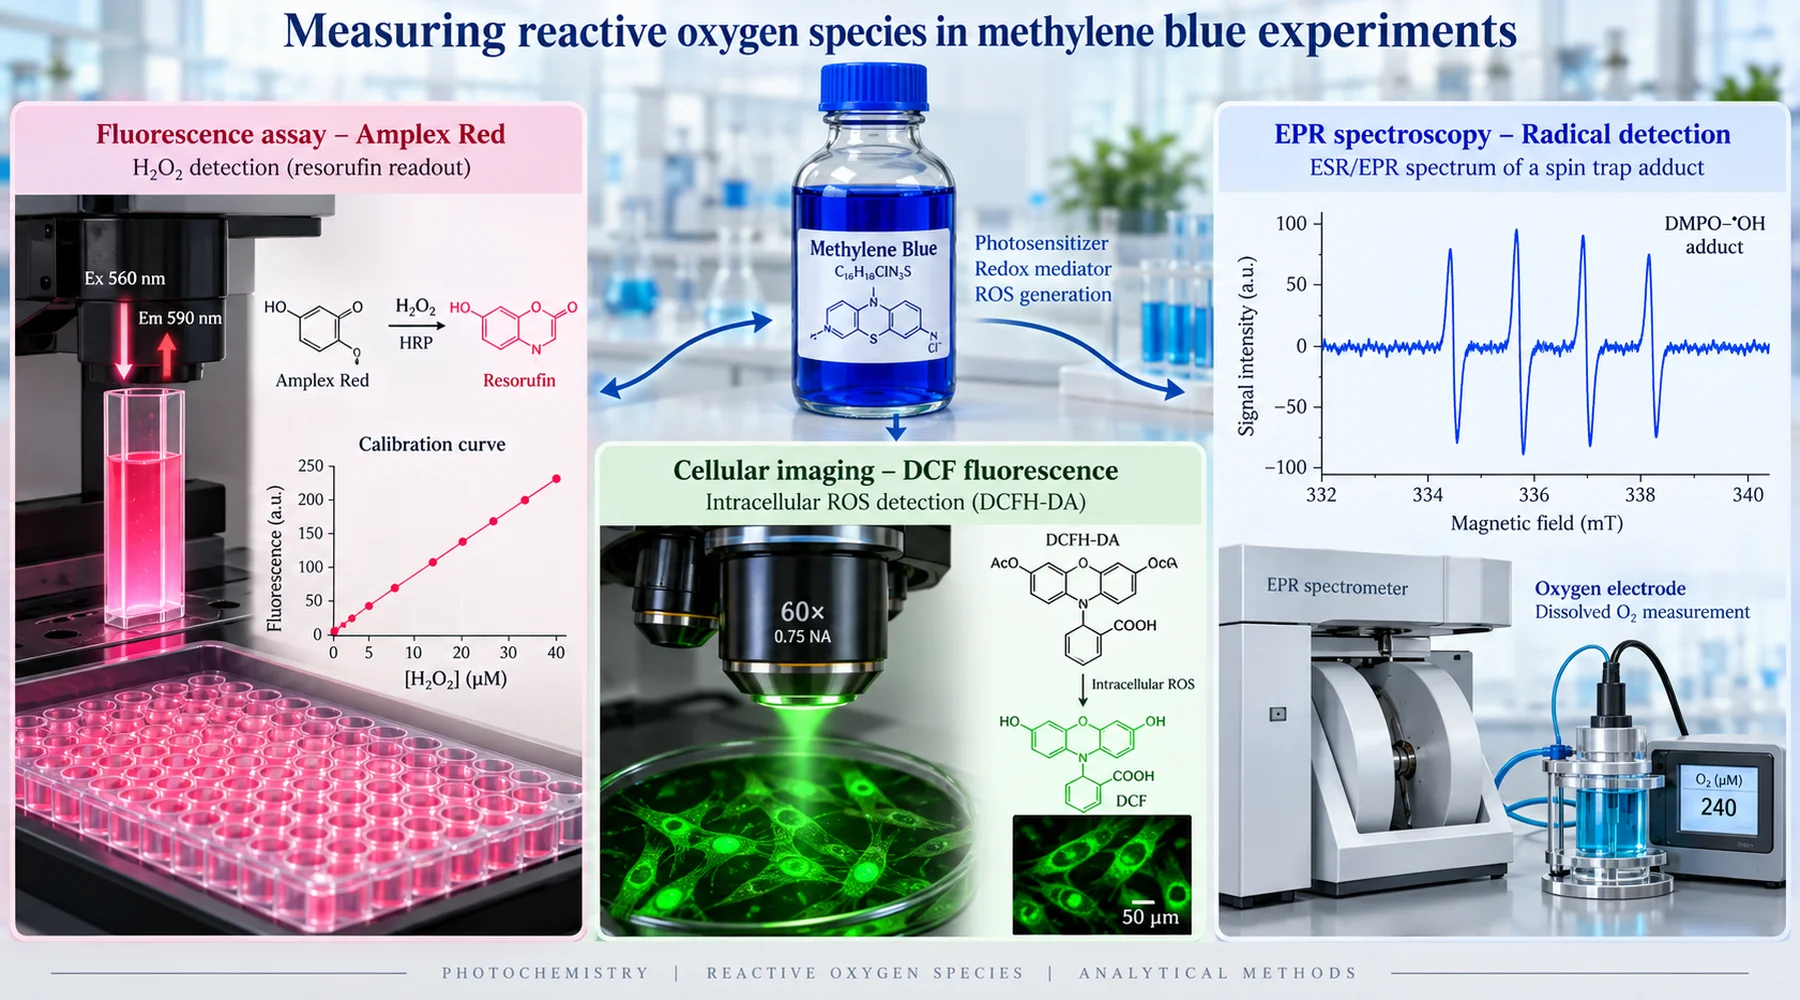
Две лаборатории спроведуваат експеримент што секоја го нарекува антиоксидантен експеримент со метиленско сино. Едната известува дека бојата ги потиснува реактивните кислородни видови. Другата известува дека ги создава. Двете прикажуваат јасни криви на одговор во зависност од дозата. Двете се искрени. Разликата не е во измама или некомпетентност. Таа произлегува од тоа што двете групи мереле различни нешта под различно осветлување, со сонди што одговараат на различни прашања, а потоа ги опишале двата одговора со истиот збор: ROS.
Метиленското сино е молекула што тешко се мери прецизно бидејќи учествува во хемијата што треба да ја набљудува. Во темнина пренесува електрони меѓу донори и акцептори и се враќа во почетната форма, подготвено за нов циклус. Под светлина станува фотосензибилизатор, достигнувајќи возбудена триплетна состојба од која може да му предаде енергија на кислородот за да создаде синглетен кислород или да пренесе електрони за да создаде радикали и водороден пероксид. Секоја сонда внесена во тој систем може да биде оксидирана, редуцирана, избледена или оптички маскирана од самата боја. Затоа, првото прашање при секое отчитување на ROS никогаш не е колкава е бројката. Прашањето е што навистина детектира тестот и како бојата влијае врз него.
Amplex Red: калибриран тест за водороден пероксид
Комбинацијата метиленско сино и Amplex Red е најдобро поткрепената комбинација во оваа литература, кога е правилно поставена. Хемијата е специфична: пероксидазата од рен користи водороден пероксид за да го оксидира супстратот Amplex во флуоресцентен производ, резоруфин, со приближна стехиометрија еден спрема еден. Пероксидот од примерокот се претвора во флуоресценција во детекторот. Ниту еден друг член на вообичаеното семејство ROS не ја поттикнува таа реакција директно.
Одлучувачката предност е калибрацијата. Внимателниот истражувач анализира стандарди со позната концентрација на пероксид во истиот пуфер, со исти концентрации на пероксидаза и супстрат, исто време на инкубација и исти оптички поставки, а потоа ги споредува отчитувањата на примероците со таа крива. Во студијата со изолирани мозочни митохондрии врз која се темели овој метод, авторите го направиле токму тоа: додавале познати количества пероксид на крајот од секое мерење, а резултатите ги прикажале како стапки во пикомоли во минута на милиграм протеин, наместо во произволни единици на флуоресценција. Токму тоа го претвора сјајот во мерење.
Три детали од таа студија заслужуваат да се применуваат. Прво, авторите го провериле сигналот со каталаза, која го разградува пероксидот. Зголемувањето на флуоресценцијата предизвикано од метиленското сино запрело кога била додадена каталаза, со што се потврдило дека сигналот потекнува од пероксид, а не од оптички артефакт. Второ, директно го испитале осветлувањето со ограничување на изложеноста на ексцитацискиот зрак, така што примероците примиле една осмина од вообичаената светлинска доза, а сигналот се намалил за само девет проценти. Повеќе од деведесет проценти од пероксидот за кој известиле бил независен од светлината користена при мерењето. Трето, одделно ја измериле елиминацијата на пероксидот со електрода и утврдиле дека бојата истовремено го зголемувала создавањето и го забавувала отстранувањето. Сонда што ја прикажува само нето-флуоресценцијата би ги споила овие два ефекта во еден.
Тестот сепак има можни извори на грешка, а метиленското сино активира неколку од нив. Бојата апсорбира во широк опсег од истата црвена област во која емитува резоруфинот, па при високи концентрации на бојата примерокот може да го маскира сопствениот сигнал преку ефекти на внатрешен филтер. Затоа стандардите треба да содржат иста концентрација на боја како примероците. Amplex Red може и самостојно да се фотооксидира, а неговиот производ резоруфин може да влезе во фоторедокс-циклуси што создаваат супероксид и пероксид. Тоа е особено важно кога експериментот вклучува и осветлување на фотосензибилизатор. Практичното решение е прво да се озрачат примероците со метиленско сино, а потоа нивните аликвоти да се анализираат со реагенси Amplex во темнина, наместо бојата и сондата да се осветлуваат заедно. На крај, супероксид дисмутазата не го потиснува едноставно сигналот на Amplex: претворањето на супероксидот во пероксид може да го зголеми. Контрола со SOD што ја зголемува флуоресценцијата не е неуспешна. Таа го идентификувала супероксидот како вид што се јавува во претходен чекор од реакцијата.
DCFDA: неспецифичен индикатор на оксидација
Комбинацијата метиленско сино и DCFDA е извор на најголемиот дел од забуната. DCFH-DA е прекурсор што се внесува во клетките. Естеразите во клетката ги отстрануваат неговите ацетатни групи, оставајќи нефлуоресцентен DCFH, а оксидацијата на DCFH создава флуоресцентен DCF. Списокот на агенси што го оксидираат е долг: хидроксилни радикали, пероксидазни и хемски интермедиери, азот диоксид, хипохлореста киселина и радикали добиени од пероксинитрит. Водородниот пероксид сам по себе не го оксидира директно со брзина што е корисна за мерење; за флуоресценцијата зависна од пероксид обично е потребно во процесот да бидат вклучени железо, хемски протеини или пероксидазна хемија.
Критиката што треба да се цитира во секој дел за методите потекнува од анализата на DCFH како сонда од Каљанараман и соработниците, како што е сумирано во студијата за мозочни митохондрии што го отфрлила DCFDA поради оваа причина. Тие покажале дека бојата реагира бавно, со некарактеризирана стехиометрија, без валидна калибрација и со соединенија што не се ROS. Сондата исто така го засилува она што го мери: едноелектронската оксидација на DCFH создава радикал на DCF што реагира со кислородот и создава супероксид, кој со дисмутација дава дополнителен пероксид. Самото отчитување делумно ја создава хемијата за која известува.
Ништо од ова не го прави DCFDA бескорисен. Тоа го прави тест за скрининг, а не за идентификација. Зголемувањето на флуоресценцијата на DCF значи дека се зголемила оксидацијата на сондата зависна од оксиданси. Тоа не значи дека се зголемил пероксидот, а секако не значи дека се зголемиле вкупните ROS — величина што ниту една единечна сонда не ја мери. Поранешните истражувања со метиленско сино што се потпирале на оксидацијата на DCF при концентрации над еден микромолар пријавиле прооксидантни ефекти, додека други системи од истиот период покажале заштита од клеточна смрт предизвикана од пероксид. Двете набљудувања може да важат за истата боја во различни редокс-контексти, а резултатот од DCF сам по себе не може да покаже кој оксиданс го носел сигналот. Важноста на претходната работа со мозочни митохондрии е во тоа што овој скрининг бил заменет со калибрирано мерење на пероксидот и оптоварувањето било утврдено директно: дури и сто наномоларна концентрација на бојата го зголемила ослободувањето на пероксид неколкукратно кај секој испитан супстрат и секоја испитана респираторна состојба.
DCFDA носи уште една замка специфична за метиленското сино. Бојата е интензивно обоена и редокс-активна, па може да ја избледи флуоресценцијата, да ја изгасне емисијата или да го оксидира хемискиот систем на сондата независно од клеточните ROS. Бесклеточна контрола со боја и сонда, но без клетки, не е опционален украс. Тоа е експериментот што покажува дали бојата стапува во интеракција со сондата.
Спинско заробување и потрошувачка на кислород: идентитет и флукс
Додека флуоресцентните сонди покажуваат дека се појавило нешто подложно на оксидација, електронската спинска резонанца со спински стапици дава одговор што е поблиску до неговиот идентитет. Класичната студија за фотохемијата на метиленското сино користела ESR за детекција на аскорбатниот радикал создаден од боја, аскорбат и светлина, а потоа покажала создавање пероксид во експерименти со потрошувачка на кислород и создавање хидроксилни радикали катализирано од железо во експерименти со спинско заробување. Секоја техника одговорила на прашање на кое другите не можеле: ESR го дала идентитетот на радикалот, потрошувачката на кислород го дала реакцискиот флукс независно од каква било флуоресцентна сонда, а комбинацијата покажала дека патиштата на синглетниот кислород и на радикалите дејствуваат во истиот осветлен систем.
Тој резултат од 1984 сè уште звучи како предупредување на етикета. При осветлување и во присуство на редуцирачки агенс, бојата создавала пероксид, а во присуство на железо системот создавал хидроксилен радикал, најреактивниот вид во оваа група. Авторите го поврзале ова со аскорбатот во окото и ја довеле во прашање непромислената офталмолошка употреба. Денешните читатели треба да ги имаат предвид условите: светлина плус редуцирачки агенс плус железо. Ако се отстрани кој било од нив, патот ослабува или исчезнува.
Кислородните електроди ја оправдуваат својата улога на поинаков начин. Електрода од Кларков тип ја мери нето-потрошувачката на кислород, со што се утврдува дека редокс-хемијата поттикната од бојата троши молекуларен кислород и се добива кинетика што ниту еден флуоресцентен артефакт не може да ја имитира. Таа не го идентификува производот. Создавањето пероксид, супероксид и вода, како и распаѓањето на синглетниот кислород, сите трошат кислород. Флуксот без идентитет е исто толку нецелосен колку и идентитетот без флукс, поради што добро поткрепените трудови ја комбинираат електродата со калибриран тест за пероксид или со стапица.
Зошто антиоксидантните резултати се противречни
Кога трите отчитувања ќе се постават едно до друго, привидните противречности во литературата за метиленското сино се сведуваат на разлики во методите и три биолошки факти.
Прво, бојата е и преносник на електрони и извор на пероксид. Со пренасочување на електроните од респираторните места каде што кислородот инаку би се претворил во супероксид, таа може да намали еден ROS, додека нејзината редуцирана форма директно го редуцира кислородот во пероксид, зголемувајќи друг. Затоа, лабораторија што работи со митохондријалната редокс-хемија и улогата на бојата како заобиколен пат треба да очекува одговори зависни од сондата: во истата кивета, отчитувањето чувствително на супероксид се намалува, додека отчитувањето на пероксид се зголемува.
Второ, пероксидот во ниски дози е сигнал, а не само оштетување. Студијата со митохондрии од мозок на глувци што ја следела претходната работа утврдила создавање пероксид при концентрација на бојата од само педесет наномолари, без лезии на митохондријалната ДНК при терапевтски нивоа, со заштита од лезии предизвикани од ротенон по претходен третман. Само при сто микромолари, далеку над терапевтскиот опсег, бојата оштетила одбрани фрагменти на ДНК, а црвена светлина во комбинација со дваесет микромолари боја создала синглетен кислород што ги оштетил сите испитани фрагменти. Предложениот механизам е хорметичен: умереното создавање пероксид ги активира антиоксидантните одбранбени механизми поврзани со Nrf2 и митохондријалната биогенеза, па краткорочното прооксидантно отчитување му претходи на подолгорочниот антиоксидантен исход. Тест отчитан по еден час и тест отчитан по еден ден може да дадат различни резултати бидејќи биологијата се променила меѓу двете мерења.
Трето, светлината одредува која молекула воопшто е присутна. Осветлувањето ја деметилира бојата кон Azure B и сродни производи, а светилката на микроскопот над садот е доволна за да ја фотосензибилизира. Експериментите во темнина и експериментите под осветлување се различни експерименти, а делот за контроли на осветлувањето и ракувањето со бојата во секој протокол треба така и да ги третира.
Минимален сет контроли и како да се толкува секое тврдење
Споредбата подолу е оригиналниот референтен материјал за оваа статија. Пред да прифатите каков било резултат за ROS со метиленско сино, проверете кои редови ги опфатиле авторите, а кои ги прескокнале.
| Контрола | Што исклучува | Како да се спроведе |
|---|---|---|
| Темнина наспроти дефинирано осветлување | Мешање на редокс-ефектите во основната состојба со фотохемијата | Иста боја, иста матрица, една група во темнина, друга под измерена светлинска доза |
| Сонда плус светлина, без боја | Фотохемија на сондата | Осветлете ја само сондата; секој сигнал е основно ниво на артефакт |
| Боја плус светлина, без клетки или супстрат | ROS од клеточно потекло наспроти ROS својствени на бојата | Бесклеточна матрица; утврдува што создава бојата сама по себе |
| Каталаза | Сигнал што не потекнува од пероксид при мерење со Amplex | Сигналот треба да се намали; имајте предвид дека осветлената боја може да ја оштети и самата каталаза |
| SOD | Учество на супероксид | Зголемувањето на сигналот на Amplex укажува на супероксид во претходен чекор од реакцијата, а не на неуспех на тестот |
| Хелатор на железо, како дефероксамин | Хемија на хидроксилни радикали од Фентонов тип | Проверува дали редокс-активното железо е одговорно за сигналот од DCFH или од стапицата |
| Стандарди на пероксид во целосната матрица | Некалибрирана флуоресценција | Додавање познати количества пероксид со идентична концентрација на боја и оптички услови |
Од ова произлегува практично правило за толкување. Amplex со пероксидаза, калибриран и проверен со каталаза, дава докази за пероксидот. DCFDA дава докази за неспецифична оксидација на сондата и ништо повеќе. Спинското заробување со контроли со ловци на радикали дава докази за идентитетот на радикалите. Потрошувачката на кислород дава докази за флуксот. Реченица што тврди повеќе отколку што нејзиниот тест може да поткрепи, колку и да е напишана самоуверено, е реченица за сондата, а не за бојата. Поврзаните дискусии за зависноста од дозата и хорметичниот опсег, митохондријалниот проток на електрони, интерференцијата во тестовите кај обоени примероци и артефактите од осветлувањето при микроскопија дополнително ја разработуваат секоја од овие точки, а секоја останува валидна и откако нејзината привремена референца ќе биде заменета.