
Raksts
Metilēnzilais un progerija: atziņas no šūnu novecošanas modeļa
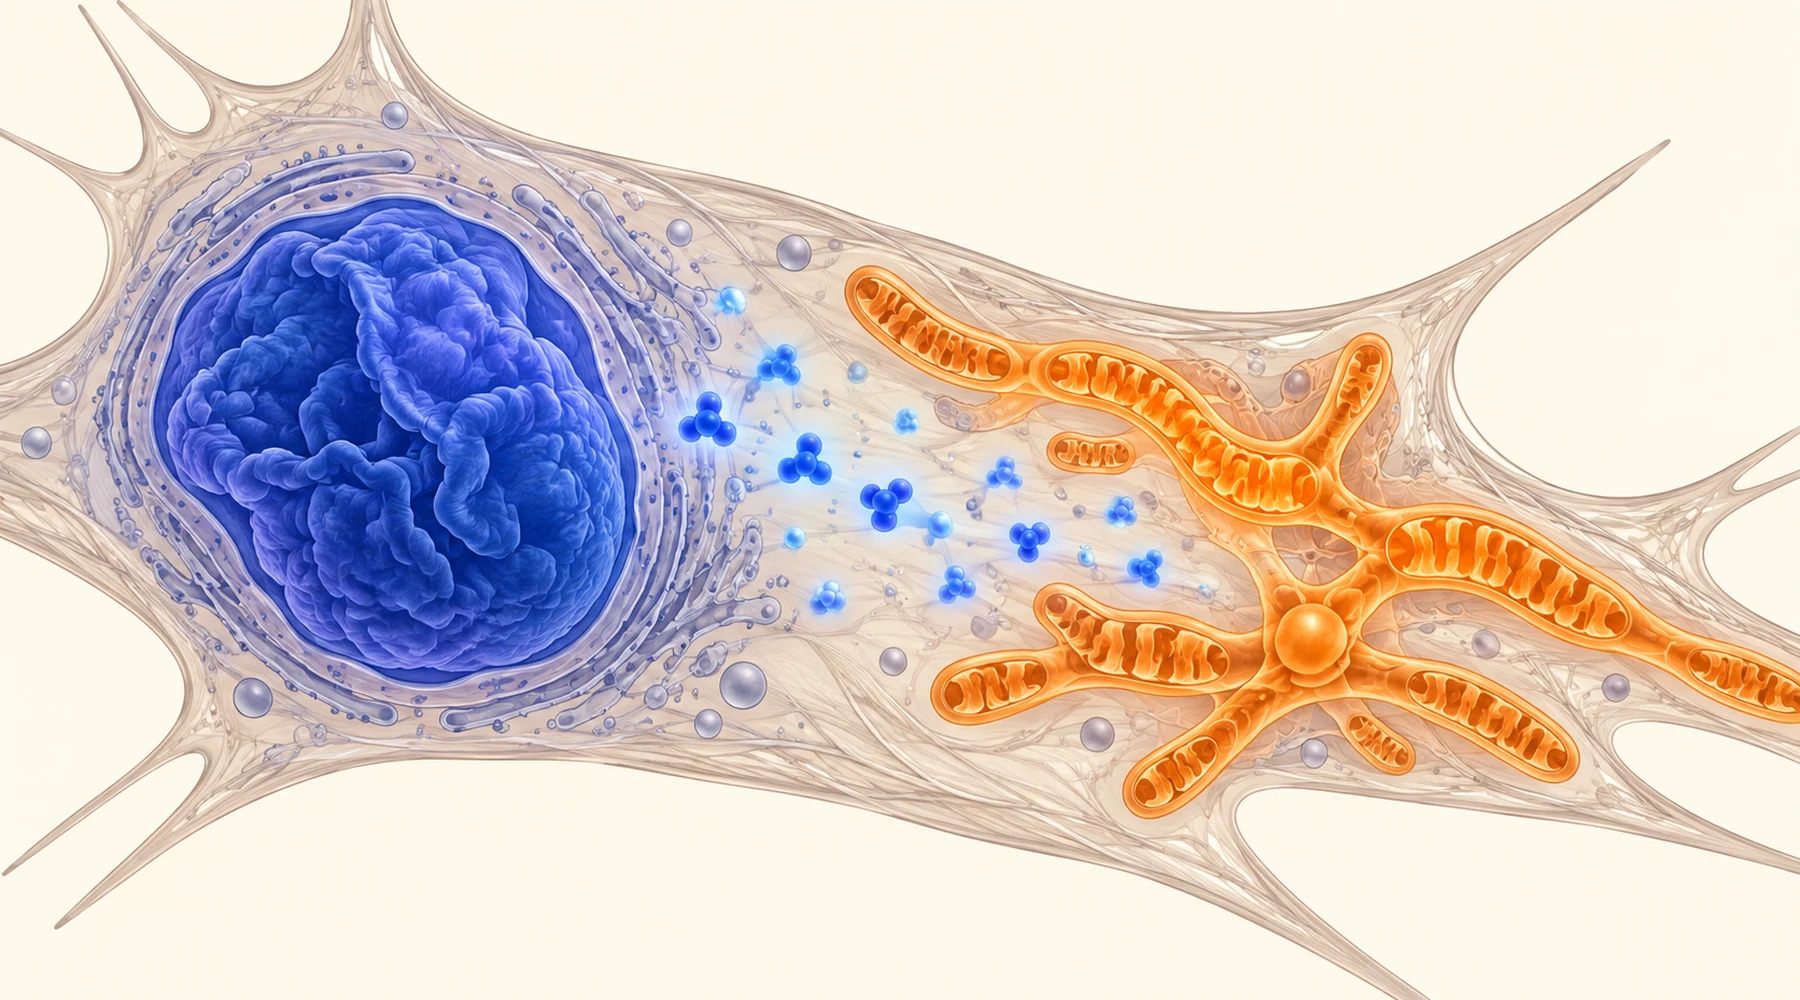
Viena burta maiņa vienā gēnā liek bērniem novecot biedējošā ātrumā. Matu izkrišana, stīvas locītavas, sašaurinātas artērijas un paredzamais dzīves ilgums tikai līdz pusaudža gadiem. Šī slimība ir Hačinsona–Gilforda progerijas sindroms, un gadiem ilgi tās izpēte bija vērsta uz kodolu, kur mutētais proteīns rada bojājumus. Merilendas Universitātes 2016. gada pētījumā tika uzdots cits jautājums: kā šajās šūnās izskatās mitohondriji? Atbilde sasaistīja divus šūnas nodalījumus, un gadsimtu sena zila krāsviela ietekmēja abus.
Tas ir Sjuna un kolēģu pētījums, kas publicēts žurnālā Aging Cell 2016. gadā. Tajā darbs notika tikai ar kultivētām šūnām. Šis fakts nosaka visu turpmākā izklāsta ietvaru. Atklājumi ir reāli un konkrēti. Tikpat konkrēta ir plaisa starp tiem un jebkādu ārstēšanu.
Modelis: viena mutācija, viens pielīpošs proteīns
Progerija sākas ar C aizstāšanu ar T LMNA gēna 1824. pozīcijā. Šī pārmaiņa nemaina aminoskābi. Tā aktivē slēptu splaisinga vietu, kā rezultātā no lamīna A proteīna tiek izgrieztas 50 aminoskābes. Saīsinātais produkts, ko sauc par progerīnu, zaudē šķelšanas vietu, kas parasti ļautu šūnai noņemt tā farnezila enkuru. Tāpēc progerīns paliek pastāvīgi farnezilēts un piestiprināts pie kodola iekšējās membrānas, kamēr normāls lamīns A cikliski piesaistītos un atdalītos.
Sekas kodolā ir labi dokumentētas un redzamas mikroskopā. Kodoliem veidojas izspīlējumi un krokas, nevis saglabājas gluda ovāla forma. Heterohromatīns — blīvi sapakotā, neaktīvā DNS, kas parasti klāj kodola perifēriju, — kļūst plānāks. Mainās tūkstošiem gēnu ekspresija. Iedomājieties kodola lamīnu kā balsta karkasu aiz tapetēm: ja vienu karkasa daļu piemetina nepareizā vietā, siena izspiežas un tapešu raksts izkropļojas visā telpā.
Pētījumā izmantoja progerijas pacientu ādas fibroblastus kopā ar kontroles šūnām ar atbilstošu pasāžu skaitu, kā arī otru šūnu līniju, kas bija pārveidota tā, lai normāli fibroblasti tieši ražotu progerīnu. Pārveidotajās šūnās attīstījās tie paši defekti, kas norāda uz progerīnu kā cēloni, nevis pacientu slimības vēsturi vai kultūrā pavadīto laiku. Smagums bija atkarīgs no daudzuma: līnijā ar lielāku progerīna ekspresiju visi defekti bija izteiktāki.
Kā izskatījās mitohondriji
Veselu fibroblastu mitohondriji veido sazarotu tīklu ap kodolu — garas caurulītes, kas pārvietojas pa citoskeleta ceļiem. Progerijas šūnu līnijās šis tīkls bija izzudis. Lielāka mitohondriju daļa bija fragmentēta, daudzi bija uzbrieduši, un elektronmikroskopija parādīja aptuveni divkāršu smagi bojātu organellu skaita pieaugumu. Attēlu uzņemšana laika intervālos parādīja, ka tie pārvietojās īsākos attālumos un lēnāk nekā kontroles šūnās.
Formas pārmaiņām sekoja funkcijas pārmaiņas. Pieauga mitohondriju superoksīda un oksidantu līmenis visā šūnā. Vairāk šūnu konstatēja membrānas potenciāla traucējumus. ATP ražošana samazinājās. Katrs no šiem novērojumiem atsevišķi nav pārsteidzošs, jo bojāti mitohondriji izdala reaktīvās skābekļa formas un ražo mazāk enerģijas. Jaunums bija piedāvātais cēlonis. PGC-1alpha, transkripcijas koaktivatora, kas virza mitohondriju bioģenēzi ar tālākās regulācijas faktoru, piemēram, NRF1 un TFAM, kā arī saplūšanas un dalīšanās regulatoru MFN1, MFN2, OPA1, FIS1 un DRP1 starpniecību, ekspresija progerijas šūnās mRNS līmenī bija aptuveni astoņas reizes zemāka, un atbilstoši samazinājās arī proteīna daudzums. Šķita, ka progerīns nomāc galveno mitohondriju veidošanas un uzturēšanas slēdzi. Šī saikne starp kodola lamīnas bojājumu un enerģijas vielmaiņu ir daļa no plašāka skaidrojuma par enerģijas ražošanu mitohondrijos, savukārt šī līdzsvara oksidantu puse ir aplūkota materiālā par oksidatīvo stresu un reaktīvo skābekļa formu kontroli.

Ko mainīja metilēnzilais
Pētnieki nedēļām ilgi nepārtraukti pakļāva šūnas metilēnzilā iedarbībai zemā, 100 nanomolārā koncentrācijā. Šūnu kultūras apstākļos tā ir ilgstoša, saudzīga iedarbība, nevis īss zāļu iedarbības impulss. Metilēnzilais cikliski pāriet starp oksidētu un reducētu formu un var pārnest elektronus mitohondrijos, tāpēc to raksturo kā uz mitohondrijiem vērstu redokssavienojumu, nevis parastu antioksidantu, kas tiek izlietots, neitralizējot vienu oksidantu.
Mitohondriji reaģēja gan normālās, gan progerijas šūnās. ATP līmenis pieauga, oksidantu līmenis samazinājās, un saruka mitohondriju īpatsvars ar smagiem defektiem. PGC-1alpha ekspresija daļēji atjaunojās, tāpat kā dažu tā regulēto mērķu ekspresija. Līdz šim tā ir vispārēja mitohondriju funkcijas atbalsta ietekme, nevis progerijai specifiska ietekme.
Rezultāti kodolā bija pārsteigums, un tie bija specifiski slimības skartajām šūnām. Kvantitatīvā formas analīze parādīja, ka kodola izspīlējumi samazinājās. Lamīnu A un C kopējais daudzums pieauga. Visievērojamākā bija progerīna pārdalīšanās: neapstrādātās progerijas šūnās tikai aptuveni 30 procenti progerīna atradās šķīstošajā nukleoplazmas frakcijā, bet pārējais bija nostiprināts pie membrānas. Pēc apstrādes šķīstošā daļa pieauga līdz aptuveni 65 procentiem, pietuvojoties normālam lamīnu sadalījumam. Atbrīvots no membrānas, progerīns mazāk velk līdzi blakus esošos proteīnus, un atjaunojās arī lamīnu A un C šķīstošās frakcijas.
Pēc šīs atbrīvošanās uzlabojās divi kodola fenotipi. Heterohromatīns ap kodola perifēriju, ko pētīja ar elektronmikroskopiju un krāsošanu heterohromatīna proteīna HP1-alpha noteikšanai, bija redzami atjaunojies. Savukārt RNS sekvenēšana parādīja transkriptoma atgriešanos tuvāk normālam stāvoklim: neapstrādātās progerijas šūnas no kontroles šūnām atšķīrās vairāk nekā 3,200 gēnu ziņā, bet apstrādātās progerijas šūnas — aptuveni 1,670 gēnu ziņā. Normālās šūnās tā pati apstrāde izmainīja tikai dažus desmitus gēnu, kas liecina, ka ietekme uz kodolu ir saistīta ar progerīnu, nevis ir vispārējs transkripcijas satricinājums. Princips, ka eksperimenti ar šūnām un dzīvniekiem atbild uz šaurākiem jautājumiem, nekā varētu šķist pēc virsrakstiem, ir skaidrots rakstā par to, kā lasīt metilēnzilā pētījumus.
Kāpēc tā nav ārstēšana
Četri ierobežojumi nosaka šī pētījuma vietu: laboratorijā.
Pirmkārt, viss notika kultivēšanas traukos. Fibroblastiem kultūrā nav asinsapgādes, imūnsistēmas vides, audu uzbūves un visa organisma farmakoloģisko procesu, kas nosaka, vai savienojums vispār sasniedz mērķi. Šajā pētījumā viela netika ievadīta nevienam dzīvniekam un netika ārstēts neviens pacients.
Otrkārt, progerijas fibroblasti ir viena šūnu tipa modelis. Slimība izraisa nāvi galvenokārt ar izmaiņām artērijās, kaulos un taukaudos, bet pētījumā pārbaudīja tikai fibroblastus un vienu gludās muskulatūras modeli. Citi audi var reaģēt citādi.
Treškārt, kodola izmaiņu mazināšanos panāca ar nedēļām ilgu nepārtrauktu iedarbību nanomolārā koncentrācijā kultūras barotnē. Koncentrācija kultivēšanas traukā nav deva, un pētījumā nekas nepārvērš 100 nanomolāru koncentrāciju barotnē par lietošanas shēmu cilvēkam. Citās medicīnas jomās metilēnzilajam ir savs devas un atbildes reakcijas sakars un drošuma profils, un šis pētījums nedod nekādu pamatu lietošanai mājās. Vispārīgais drošuma konteksts ir aplūkots rakstā par metilēnzilā drošumu un blakusparādībām.
Ceturtkārt, progerija nav normāla novecošana. Tā ir reta slimība, ko izraisa viena mutācija un kurā kodola balsta karkass tiek bojāts noteiktā veidā. Savienojums, kas kultivētās šūnās mazina šo konkrēto bojājumu, maz ko pasaka par novecošanu cilvēkiem bez šīs mutācijas. Šūnu fenotips ļauj ieskatīties kodola un mitohondriju savstarpējā saziņā, nevis sniedz rezultātu par ilgmūžību.
Tāpēc korektajā kopsavilkumā jānorāda apstākļi. Progerijas fibroblastos progerīns nomāc PGC-1alpha, un mitohondriji kļūst fragmentēti, gausi, ar augstu oksidantu līmeni un zemu enerģijas ražošanu. Metilēnzilais zemā koncentrācijā atjaunoja mitohondriju rādītājus visās šūnās un papildus atbrīvoja progerīnu no kodola membrānas slimības skartajās šūnās, daļēji atjaunojot kodola formu, heterohromatīnu un gēnu ekspresiju. Šī divējādā iedarbība padara pētījumu ievērības cienīgu. Tā nepadara metilēnzilo par progerijas vai novecošanas terapiju.