
Мақала
Метилен көгі және азот тотығы: NOS, cGMP және қантамырлық сигнал беру
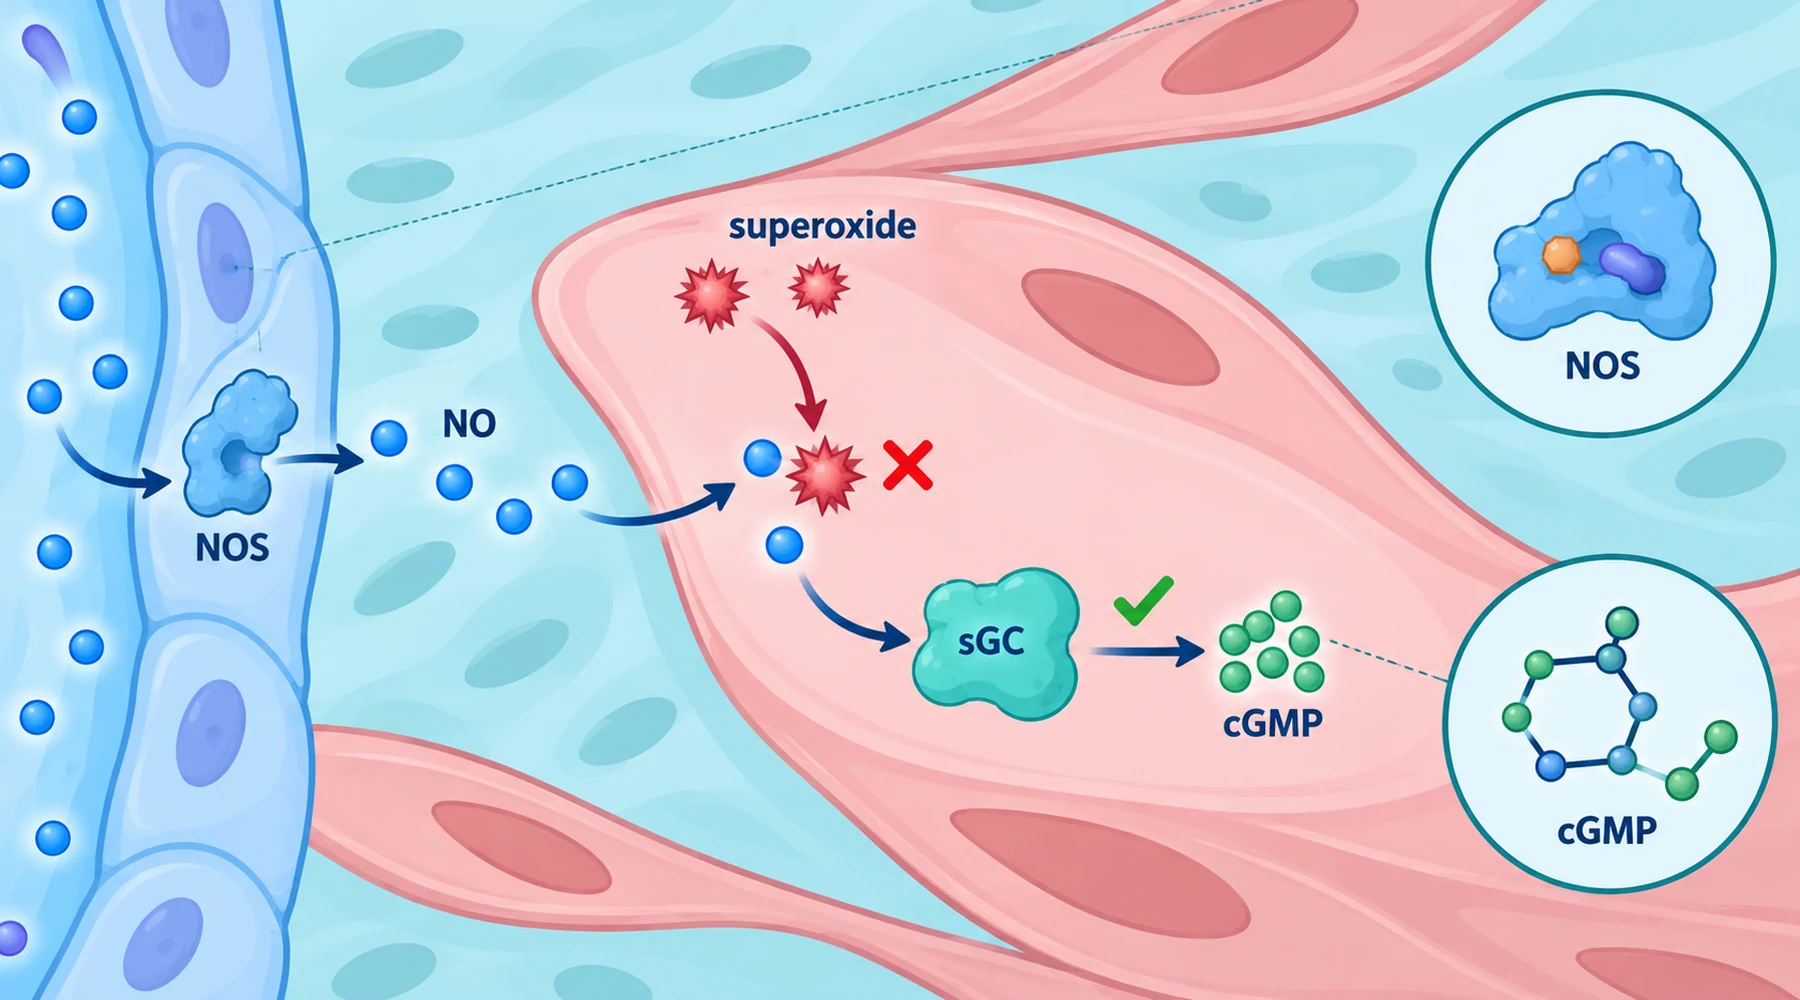
Сұрақ қарапайым естіледі: метилен көгі азот тотығын тежей ме? Зертханада бұл сұрақ төрт бөлек сұраққа бөлінеді және әрқайсысын тексеруге әртүрлі тәжірибе қажет. Оларды шатастыру — метилен көгі мен азот тотығы туралы жазылған мәтіндердің сенімді көрінгенімен, нақты болмауының басты себебі.
Азот тотығы сигналын төрт буынды тізбек ретінде елестетіңіз. Азот тотығы синтазасын түзу үшін ген транскрипцияланады. Фермент аргининді азот тотығына айналдырады. Газ басқа затпен реакцияға түскенге дейін өз нысанасына қарай диффузияланады. Ерігіш гуанилатциклаза оны танып, циклдік GMP түзеді. Метилен көгінің әр буынға әсері туралы жарияланған деректер бар, бірақ бұл дәлелдер әртүрлі тәжірибелік жүйелерден, әртүрлі концентрациялардан және әртүрлі изоформалардан алынған. Бір буындағы нәтиже басқа буынға әсерді дәлелдемейді.
Қалыпты тізбектің қарапайым түсіндірмесі
Қантамыр қабырғасында қалыпты реттілік мынадай. Қандай да бір тітіркендіргіш эндотелий жасушасына әсер етеді. eNOS немесе NOS3 деп аталатын эндотелийлік азот тотығы синтазасы азот тотығының қысқа әрі шағын импульсін түзеді. Газ көршілес тегіс бұлшықет жасушасына диффузияланып, ерігіш гуанилатциклазаның тотықсызданған темірі бар гемімен байланысады және GTP-нің циклдік GMP-ге айналуын жылдамдатады. Циклдік GMP G протеинкиназасын белсендіреді, кальцийді реттеу үдерістері өзгереді және бұлшықет босаңсиды.
Бұдан бөлек қарастыруға тұратын екінші тізбек бар. Инфекция кезінде немесе цитокиндер әсер еткенде жасушалар басқа ферменттің — NOS2 деп те аталатын индукцияланатын азот тотығы синтазасының, яғни iNOS-тың генін транскрипциялайды. Ол eNOS-пен салыстырғанда азот тотығының көбірек әрі ұзаққа созылатын ағындарын түзеді. Үшінші изоформа — нейрондық NOS немесе nNOS — тағы басқа жағдайларға тән. Мақалада изоформасы нақтыланбай, азот тотығы синтазасы деп жазылса, тоқтап, қайсысы өлшенгенін тексеріңіз. Метилен көгінің электрондарды қалай тасымалдайтыны туралы шолу тотығу-тотықсыздану нысаналарына қатысты да осы ойды айтады: тасымалдаушы өздігінен ештеңе істемейді, ал нәтижені оның екі ұшындағы серіктестер анықтайды.
Өлшенген циклдік GMP де ферментті тікелей тексеру нәтижесі емес, бірнеше үдерістің жиынтық көрсеткіші. Оның деңгейі циклазаның синтезінен фосфодиэстеразалар арқылы ыдырауды шегергендегі нәтижені көрсетеді; қантамырдың тегіс бұлшықетінде әсіресе PDE5 маңызды. Сондықтан циклдік GMP-нің төмендеуі сигналды қабылдаушыға азырақ сигнал жеткенін білдіреді. Бірақ бұл өздігінен қай буынның бұзылғанын көрсетпейді.
1-буын: iNOS ферменті азырақ түзіледі
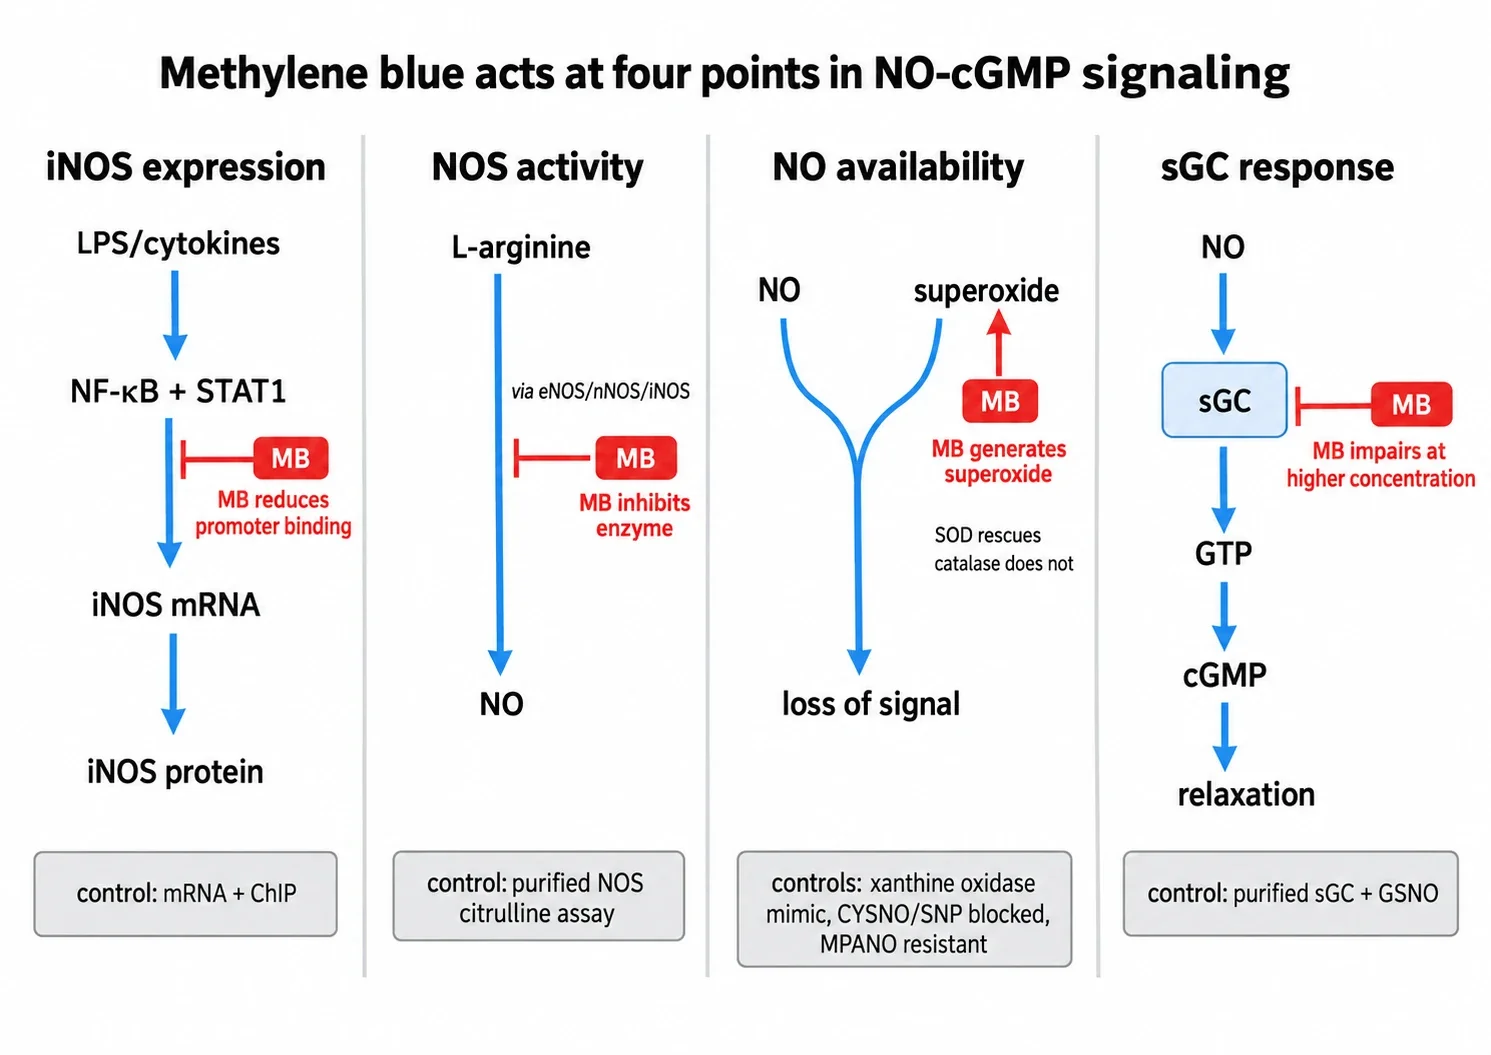
Бактериялық липополисахаридпен, гамма-интерферонмен немесе екеуімен де ынталандырылған тышқан макрофагтарында метилен көгі iNOS ақуызының күтілген артуына жол бермеді және макрофагтардағы транскрипция тәжірибелерінде iNOS ақпараттық РНҚ-сын айтарлықтай азайтты. Мұнда өзгермеген құбылыстар маңызды. I каппа B альфа тежегішінің ыдырауы, NF каппа B мен STAT1 фосфорлануы және осы факторлардың ядроға өтуі негізінен сақталды. Азайғаны — олардың ДНҚ-мен байланысуы; мұны iNOS промоторымен байланысудың төмендегенін көрсеткен хроматиндік иммунопреципитация растады.
Бұл — бар ферментті бірден бөгеу емес, фермент мөлшерін анықтайтын алдыңғы кезеңдегі ген реттеу әсері. Ол ақуыз пайда болғанға дейін транскрипциялық факторлар промотормен байланысуы тиіс болатын қабынулық сигнал беруге қатысты. Бұл тыныш күйдегі қантамырда тұрақты түрде болатын eNOS туралы тікелей ештеңе айтпайды, сондықтан оны дәл осы шеңберде сипаттау керек.
2-буын: бар NOS ферменті баяуырақ жұмыс істейді
Егеуқұйрықтардағы зерттеу басқа деңгейді тексерді. Есі сақталған еркек егеуқұйрықтарға липополисахарид көктамыр ішіне енгізілді, содан кейін үш сағаттан соң физиологиялық ерітінді немесе дене салмағының әр кг-на 3 мг метилен көгі көктамыр ішіне енгізілді. Гипоталамустағы NOS белсенділігін зерттеуде гипоталамустың медиалдық базалдық бөлігіндегі азот тотығы синтазасының белсенділігі таңбаланған аргининнің цитруллинге айналуы арқылы өлшенді. Стресс пен тек физиологиялық ерітіндінің өзі кальцийге тәуелсіз белсенділіктің бір бөлігін туындатты, ал липополисахарид оны бақылау деңгейінен шамамен он есе арттырды. Метилен көгі осы индукцияланған екі құрамдасты да жойды. Сол тінде, сол дозада және сол уақыт нүктесінде кальцийге тәуелді конститутивті белсенділік өзгермеді.
Бұл нәтижені дәл жазылған күйінде түсініңіз: сол жағдайларда өлшенген iNOS типті белсенділік басылды. Бұл ген экспрессиясының өлшемі емес және iNOS-қа қатысты eNOS немесе nNOS-пен салыстырғандағы тұрақты селективтіліктің дәлелі де емес. Тазартылған ферментпен жүргізілген жұмыстар бұл сақтықтың маңызын арттырады. Тазартылған NOS пен гуанилатциклазаны салыстыруда хабарланғандай, тазартылған азот тотығы синтазасын тікелей тексергенде метилен көгі 30 микромоляр концентрацияда цитруллин түзілуін толық бөгеді; жартылай тежейтін концентрация супероксиддисмутазасыз шамамен 5.3 микромоляр, ал онымен бірге 9.2 микромоляр болды. Тазартылған nNOS-ты бөлек зерттеу ферментпен байланысқан гемнің тотығуы қатысатынын көрсетті. Бұдан шығатын практикалық қорытынды: оқшауланған жүйелерде NOS-тың тікелей тежелуі шынымен бар, бірақ гипоталамустағы нәтижені метилен көгі барлық жерде конститутивті NOS-тың бәріне әсер етпейді деген жалпы тұжырымға айналдыруға болмайды.
3-буын: азот тотығы нысанасына жетпей жоғалады
Циклдік GMP төмендеуін ферментті бөгеуден басқа құбылыспен түсіндіруге болатынының ең айқын дәлелі өсірілген қоян өкпе артериясының тегіс бұлшықет жасушаларынан алынды. Қантамырдың тегіс бұлшықетіндегі супероксидті зерттеуде тәжірибе құрылымы азот тотығы донорларын тікелей қосу арқылы эндогендік NOS-ты толық айналып өтті, содан кейін метилен көгі циклдік GMP жауабын сонда да баса ма деген сұрақ тексерілді.
1-ден 100 микромолярға дейінгі концентрацияларда үш донор тексерілді: S-нитрозо-L-цистеин, натрий нитропруссиді және MPANO деп аталатын тұрақты дезаминделген аналог. Олардың бәрі циклдік GMP-ні шамамен 1.5 еседен 12 есеге дейін арттырды. 10 микромоляр метилен көгі алғашқы екеуінің жауабын 51-ден 100 пайызға дейін тежеді, ал MPANO жауабын өзгеріссіз қалдырды. Егер метилен көгі тек циклазаның каталитикалық орталығын бөгеген болса, донорлар арасындағы мұндай селективтілікті түсіндіру қиын болар еді, өйткені үшеуі де тізбектің кейінгі кезеңіндегі бір ферментке әсер етеді.
Содан кейін үш бақылау тәжірибесі механизмнің супероксидпен байланысты екенін нақтылады. Біріншіден, ксантин мен ксантиноксидаза арқылы жасушадан тыс супероксид түзу дәл сол үлгіні қайталады: CYSNO мен нитропруссид жауаптары бөгелді, ал MPANO жауабы сақталды. Екіншіден, метилен көгі тегіс бұлшықет жасушаларында доза мен уақытқа тәуелді супероксид түзілуін туындатты; бұл c цитохромының тотықсыздануы арқылы өлшенді. Үшіншіден, супероксиддисмутаза тежелудің толық алдын алды, ал каталаза мұны істемеді. Бұл осы тәжірибелік жүйеде тікелей әсер ететін бөлшек сутек пероксиді емес, супероксид екенін көрсетеді.
Тәжірибенің бірге өсіру нұсқасын да сипаттаған жөн, өйткені ол әсердің кеңістікте қайда болатынын көрсетеді. Жабын әйнектердегі эндотелий жасушалары тегіс бұлшықет жасушаларымен қысқа уақыт бірге өсірілді, сонда базалдық жағдайда бөлінетін эндотелийлік фактор тегіс бұлшықеттегі циклдік GMP-ні үш-сегіз есе арттырды. Екі бөліктің кез келгенін метилен көгімен алдын ала өңдеу бұл сигналды азайтты, ал супероксиддисмутаза эндотелийді алдын ала өңдеу әсерінен сигналдың төмендеуін ішінара қалпына келтірді. Басқаша айтқанда, метилен көгінің сигналды қабылдайтын тегіс бұлшықет жасушасының ішінде әсер етуі міндетті емес. Ол жолдағы хабаршыны жою арқылы сигналды азайта алады. Метилен көгі туралы зерттеулерді оқу нұсқаулығы мұны жалпы ереже ретінде қарастырады: молекулалық нысананы атамас бұрын араласу қай бөлікте болғанын атаңыз.
Мұны NOS тежелуі деп атау қате болар еді. Донорлардың жұмыс істеуі үшін синтаза кезеңі қажет болған жоқ, бірақ сигнал сонда да төмендеді.
4-буын: сигналды қабылдаушының өзі әлсізірек жауап береді
Ерігіш гуанилатциклазаға тікелей әсерлер бар, бірақ концентрациялар маңызды. Жоғарыда келтірілген тазартылған ферменттерді салыстыруда азот тотығымен ынталандырылған циклазаны жартылай тежеуге шамамен 60 микромоляр метилен көгі қажет болды, ал NOS үшін жартылай тежелу шамамен 5–9 микромолярда байқалды; тіпті 1 миллимолярдың өзі максималды бөгеуді тек ішінара қамтамасыз етті. Бұл — шамамен алты-он бір еселік айырмашылық. Сондықтан төмен микромоляр концентрациядағы жасушалық тәжірибеде циклдік GMP азайса, тек циклдік GMP мәніне сүйеніп, оны циклазаның селективті тежелуі деп атауға болмайды.
Кейінгі тотығу-тотықсыздану зерттеуі тағы бір сақтық жайтты қосты: метилен көгі азот тотығымен белсендірілген циклазаны гем темірінің ауада жай тотығуынан өзгеше механизм арқылы белсенділігінен айырды. Демек, сигналды қабылдаушының қызметі бұзылуы мүмкін, бірақ оның химиялық механизмі толық анықталмаған. Концентрациялар арасындағы алшақтық төмен микромоляр концентрациялар әсер еткенде алдымен супероксид пен NOS әсерлерін жоққа шығару керектігін білдіреді. Фосфодиэстеразаны бақылау да осы жерде маңызды. Егер ыдырау өлшенбесе немесе бөгелмесе, циклдік GMP жиналуының азаюы синтездің төмендеуіне де, ыдыраудың жылдамдауына да, екеуіне де сәйкес келеді.
Неліктен мұны қан қысымы туралы бір тұжырымға сыйғызуға болмайды
Әр буын әртүрлі жүйеде анықталды. Макрофагтардағы транскрипция гипоталамустағы фермент белсенділігімен бірдей емес. Липополисахаридтен кейінгі гипоталамус белсенділігі тыныш күйдегі эндотелийлік тонуспен бірдей емес. Бірге өсірілген жасушаларда базалдық жағдайда бөлінетін эндотелийлік фактор агонист ынталандырған вазодилатациямен бірдей емес. 10 микромоляр метилен көгі әсер еткен өсірілген өкпе артериясының жасушалары адамның қанайналым жүйесі емес. Осыларды метилен көгі азот тотығын бөгеу арқылы қан қысымын көтереді деген бір тұжырымға біріктіру бақылау тәжірибелері сақтап қалу үшін жасалған айырмашылықтарды жояды.
Үш тексеру түсіндірменің дәлдігін сақтайды. Біріншіден, изоформаны атаңыз: тыныш күйдегі қантамыр тонусы үшін eNOS, индукцияланған қабынулық ағын үшін iNOS, нейрондық жағдайлар мен тазартылған фермент қолданылатын кейбір тәжірибелер үшін nNOS. Екіншіден, азот тотығы сигналының жеткізілу жолын атаңыз: эндогендік синтез, эндотелийден базалдық бөліну немесе CYSNO, нитропруссид не MPANO сияқты нақты донор. Өйткені тұрақты донор метилен көгінің әсеріне төзімді болды, ал тұрақсыз донорлар төзімді болмады. Үшіншіден, концентрация мен қалпына келтіруші бақылауды атаңыз: супероксиддисмутазамен қалпына келу супероксидтің қатысуын көрсетеді, каталазаның әсер етпеуі сол тәжірибелік жүйеде сутек пероксидінің қатысуына қарсы дәлел болады, ксантиноксидазамен әсерді қайталау осы механизмнің жеткілікті екенін көрсетеді, ал тазартылған фермент сынақтары катализге тікелей әсерді сигналдың жолдағы жоғалуынан ажыратады.
Қысқаша қорытынды мынадай. Метилен көгін циклазаның селективті бөгегіші емес, азот тотығынан циклдік GMP-ге дейінгі сигнал беруді бірнеше нүктеде өзгертетін зат ретінде қарастырған дұрысырақ. Тәжірибелік жүйе мен концентрацияға қарай ол iNOS транскрипциялық факторларының байланысуын азайта алады, NOS ферменттерін тікелей тежей алады, супероксид түзу арқылы азот тотығының қолжетімділігін төмендете алады және азот тотығымен белсендірілген циклазаның қызметін бұза алады. Қантамырлық зерттеулердегі циклдік GMP сигнал беруінің рөлі және жасушалық сынақтарда қолданылатын азот тотығы донорларын салыстыру осы тармақтардың әрқайсысының бірін толығырақ қарастырады, ал тотығу-тотықсыздану әсерлерін ферменттік әсерлерден ажырату әдістері бұл әдебиетте супероксиддисмутаза, каталаза және тұрақты донор бақылауы неліктен жиі бірге қолданылатынын түсіндіреді.
Метилен көгінен кейін циклдік GMP мәнінің төмен болуы тізбектің бұзылғанын көрсетеді. Қай буынның бұзылғанын тек бақылау тәжірибелері анықтайды.