
Artikkel
Kui metüleensinine häirib katset, millega seda mõõdetakse
Ühes laboris kasvatatakse sebrakala embrüoid metüleensinises tavapärase kasvatamiskontsentratsiooni juures ning mõõdetakse seejärel ainevahetust kahel viisil. Esimesel päeval näitab Seahorse'i analüsaator hapnikutarbimise suurenemist. Neljandal ja viiendal päeval näitab Alamar Blue mikroplaat energiakulu vähenemist. Sama värvaine, sama kalaliin, vastupidised järeldused. Siis tuleb tagasihoidlik kontrollkatse: süvendid, milles on metüleensinine ja Alamar Blue reaktiiv, kuid mitte ühtegi kala, annavad samuti nõrgema signaali kui reaktiiv üksi. Osa tulemusest tulenes bioloogiast. Osa sellest, et värvaine hindas ise oma eksamit. See jaotus, mida kirjeldab 2025. aasta ajakirjas Communications Biology avaldatud uuring metüleensinise kohta arenevates sebrakalades, on metüleensinise põhjustatud analüüsihäirete tüüpiline kuju ning selgitab, miks redoksaktiivsed värvained vajavad kontrolle, mida tavalised uuritavad ühendid ei vaja.
Mida resasuriinianalüüs tegelikult näitab
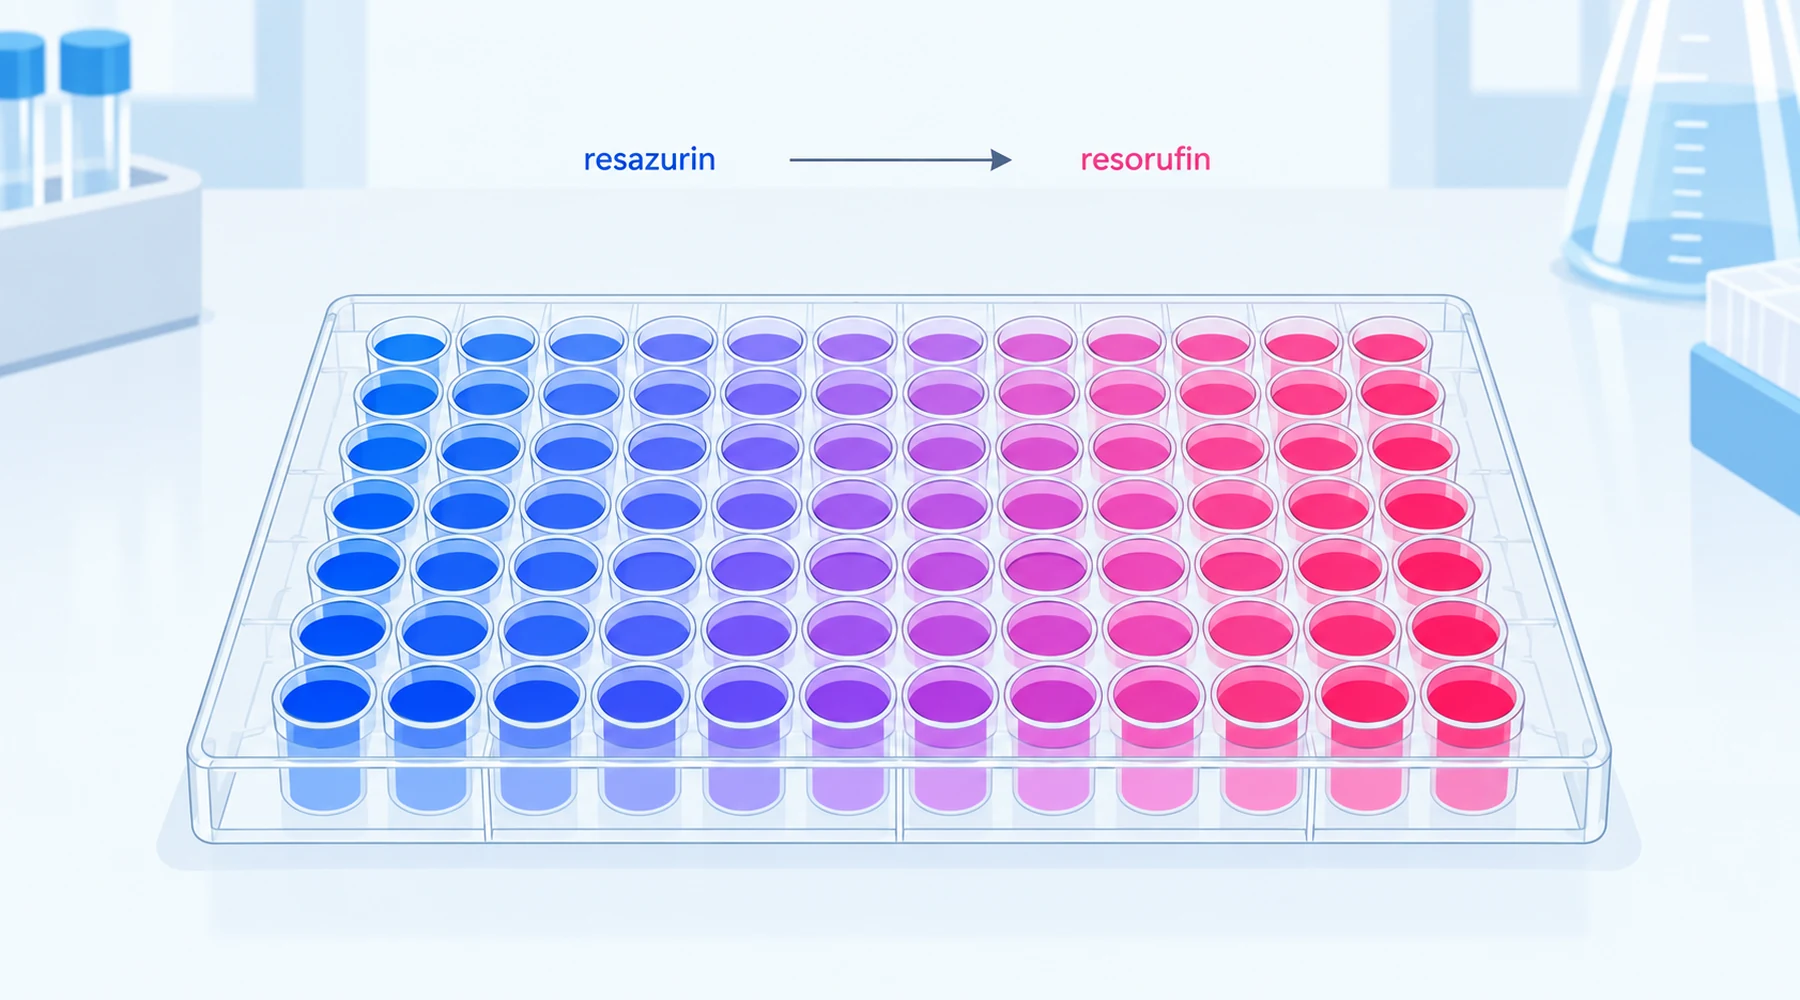
Alamar Blue on resasuriinilahuse kaubamärk, seega kirjeldavad metüleensinise põhjustatud Alamar Blue analüüsi häired ja resasuriinianalüüsi häired sama vastuolu. Oksüdeeritud resasuriin on sinine ja fluorestseerub väga nõrgalt. Metaboolselt aktiivsed rakud redutseerivad selle resorufiiniks, mis on roosa ja fluorestseerub tugevalt ergastuslainepikkuse 560 nm ning emissioonilainepikkuse 590 nm lähedal. Tootja mikroplaadiprotokolli järgi on kasutatavad vahemikud ligikaudu 530 kuni 570 nm ergastuseks ja 580 kuni 610 nm emissiooniks. Edasisel redutseerimisel muutub resorufiin nõrgalt fluorestseeruvaks dihüdroresorufiiniks, mistõttu liiga suur rakkude arv süvendis või liiga pikk inkubatsiooniaeg painutab kalibreerimiskõvera ülemist otsa allapoole.
Elektronid pärinevad peamiselt NADH-st ja NADPH-st ning liiguvad tsütosoolis, mikrosoomides ja mitokondrites paiknevate rakuliste reduktaaside ja diaforaaside kaudu. Seega näitab mõõtetulemus summaarset redutseerimisvõimet, mitte elujõuliste rakkude arvu ega mitokondrite tööd eraldi. Tugevam signaal võib tähendada rohkem rakke, suuremat redutseerivate ekvivalentide voogu raku kohta või mõlemat. Ühend, mis suunab NADH teisele rajale, muudab signaali ilma ühtegi rakku tapmata. Hoidke see lause meeles, sest NADH ümbersuunamine ongi metüleensinise põhitegevus.
Kaks häiremehhanismi, üks nõrgem signaal
Metüleensinine moonutab resasuriini mõõtetulemust kahe sõltumatu mehhanismi kaudu ning kumbki neist vähendab ka üksinda näivat fluorestsentsi.
1. mehhanism on optiline. Metüleensinine neelab tugevalt punases spektriosas: monomeeri neeldumisriba paikneb 660 kuni 665 nm lähedal ning dimeeri õlg 607 kuni 610 nm lähedal, kusjuures selle saba ulatub tagasi resorufiini emissiooni suunas ligikaudu 590 nm juures. Valguse teel olev värvaine neelab osa ergastusvalgusest ja neelab uuesti osa kiiratud fluorestsentsist. See sisefiltriefekt muudab süvendi signaali nõrgemaks isegi siis, kui resorufiini teke ei muutu. Spekter muutub ka koos värvaine olekuga: metüleensinise spektrite faktoranalüüs vees ja tsüklodekstriinilahustes eristab monomeeri, dimeeri ja peremees-külaliskompleksi kolme vormina, mille ekstinktsioonikoefitsiendid vahemikus 500 kuni 700 nm erinevad. Seega sõltub optilise vea suurus kontsentratsioonist, agregatsioonist ja seondumisest. Katses eristage lihtsat optilist nõrgenemist molekulaarsest kustutamisest allpool kirjeldatud lisandi saagise katse abil, sest korrigeerimisviisid on erinevad.
2. mehhanism on redokskonkurents. Oksüdeeritud metüleensinine võtab NAD(P)H-lt vastu elektrone ja moodustab värvitu leukometüleensinise, mille molekulaarne hapnik oksüdeerib tagasi siniseks vormiks. Seejuures tekivad redutseeritud hapnikuproduktid, sealhulgas vesinikperoksiid. Selle tsükli iga ring kulutab redutseerivaid ekvivalente, mis muidu redutseeriksid resasuriini, ning tarbib hapnikku, tekitades kõrvalsaadusena peroksiidi. Nõrgem Alamar Blue signaal võib seega tähendada, et elektronid liikusid metüleensinise tsükli kaudu, mitte resorufiini moodustumisse. Plaadil paistab see pärsitud ainevahetusena, olenemata sellest, mida rakud tegelikult tegid. Sama keemia selgitab vastupidist lõksu hapnikumõõteseadmetes: hapnikuga taasoksüdeeruv redutseeritud värvaine põhjustab keemilist hapnikutarbimist ka ilma bioloogilise materjalita. Seetõttu kuuluvad värvainega tühikatsed ka respiromeetria juurde, nagu selgitab mitokondrite kontekstis hapniku, ATP ja membraanipotentsiaali mõõtmiste võrdlus.
Nii signaal kui ka bioloogia võivad tõepoolest muutuda
Sebrakalade uuring on väärtuslik just seetõttu, et see ei taanda tulemust lihtsaks kas-või-valikuks. Bioloogiline mõju oli tõeline: 1 päeva vanustel embrüotel suurenes basaalne hapnikutarbimine mõlema kasvatamiskontsentratsiooni juures, ATP-ga seotud respiratsioon suurenes madalama kontsentratsiooni juures, JC-10 sondiga mõõdetud membraanipotentsiaal suurenes teisel päeval ning mitokondriaalsete komplekside transkriptide hulk vähenes esimesel ja neljandal päeval. Ka artefakt oli tõeline: enne Alamar Blue etappi kolm korda pestud kaladel oli pea-, suu- ja haistmispiirkonnas endiselt nähtav sinine värving ning värvainet ja reaktiivi sisaldavates rakuvabades süvendites vähenes fluorestsents iseenesest veidi, kuid statistiliselt oluliselt. Organismide Alamar Blue signaali vähenemine neljandal ja viiendal päeval oli suurem kui rakuvaba mõju, mistõttu autorid tõlgendasid tulemust tegeliku ainevahetusmuutusena, mida vaadeldi läbi veidi moonutava läätse. See on õige mõttemudel. Redokstsüklis osalev aine, mis on ühtlasi sinine neelaja, mõjutab tavaliselt korraga nii uuritavat rada kui ka indikaatori keemiat. Kontrollide ülesanne on mõõta kummagi panust, mitte kuulutada üks neist kujuteldavaks. Seotud õppetund pärineb tsüklodekstriiniga seondumise uuringust: kui peremeesmolekul sidus värvaine endasse, vähenesid koos nii värvumine kui ka glükoosi omastamise aktiveerumine. See viitas sellele, et metaboolne mõju vajas otsest koostoimet värvainega, mitte hajusat redoksmüra. Värvaine füüsikalise mõõtetulemuse seostamine funktsionaalse mõõtetulemusega ongi võte, mis eristab mehhanismi artefaktist, ning värvainepõhiste ainevahetusväidete tõlgendamise juhend arendab seda harjumust edasi.
Kontrollid, mis neid eristavad
Tehke need kontrollid enne resasuriiniplaadilt saadud mis tahes metüleensinise tulemuse tõlgendamist. Kontsentratsioonid, sööde, inkubatsiooniaeg ja valgustus peavad täpselt vastama rakukatsele, sest kõik eespool kirjeldatud mehhanismid sõltuvad neist.
| # | Kontroll | Mida see tuvastab | Vastuvõetav tulemus | Kui tingimus pole täidetud |
|---|---|---|---|---|
| 1 | Sööde ja värvaine, ilma reaktiivi ja rakkudeta | Värvaine taustsignaal analüüsi lainepikkustel | Taust on rakulise signaaliga võrreldes väike | Lahutage iga kontsentratsiooni oma tühikatse tulemus, mitte üks ühine taustväärtus |
| 2 | Sööde ja reaktiiv, ilma värvaine ja rakkudeta | Reaktiivi spontaanne redutseerumine | Madal ja stabiilne lähtetase kogu inkubatsiooni vältel | Lühendage inkubatsiooni, vahetage söödet või leppige kõrgema alumise piiriga |
| 3 | Sööde, värvaine ja reaktiiv, ilma rakkudeta | Värvaine ja reaktiivi otsene keemiline koostoime | Müra piires sama tulemus mis kontrollil 2 | Esitage kõrvalekalle, ärge omistage seda rakkudele |
| 4 | Resorufiini lisamine lahustikontrolli ja värvainet sisaldavatesse süvenditesse | Optiline nõrgenemine või kustutamine | Mõlemas maatriksis võrdne lisandi saagis | Mõõtke kadu iga värvainekoguse juures ja korrigeerige või kasutage teist mõõtmismeetodit |
| 5 | Rakuvaba värvainejäägi mõju pärast pesemist ja ilma pesemiseta | Pärast pesuetappe alles jäänud värvaine | Pesemine kõrvaldab rakuvaba mõju | Rakkudesse sisenenud värvaine jääb alles, seega on kontrollid 3 ja 4 endiselt vajalikud |
Kontrollid 3 ja 4 on paar, mille enamik artikleid vahele jätab ja mida enamik metüleensinist käsitlevaid artikleid vajab. Kontroll 3 tuvastab keemilise mõju, kontroll 4 optilise mõju ning koos määravad need artefakti ulatuse enne mis tahes bioloogilise väite esitamist.
Sõltumatud mõõtmismeetodid, igaühel omad piirangud
Ükski teine analüüs ei kinnita üksinda esimese õigsust. Iga sõltumatu mõõtmismeetod väldib üht häiremehhanismi, kuid jääb mõne teise suhtes haavatavaks. Seepärast valige kombinatsioon, mille pimealad ei kattu. Redoksaktiivsete ühendite analüüsivaliku maatriks selgitab meetodite sidumise loogikat ning membraanipotentsiaali sondide juhend käsitleb üksikasjalikult fluorestsentsi piiranguid.
Seahorse'iga mõõdetav hapnikutarbimine jälgib elektronide liikumist hapnikuni, mitte resorufiini moodustumisse, vältides täielikult indikaatori keemiat. Kuid värvaine tarbib hapnikku ka keemiliselt, mistõttu on täissöötmes tehtavad mitokondriteta värvaine tühikatsed kohustuslikud. ATP lutsiferaasianalüüsid kasutavad resorufiini fluorestsentsi asemel bioluminestsentsi ning väldivad seega nii optilist kattuvust kui ka reduktaasidega seotud konkurentsi. Vastutasuks näitavad need aga ATP varu tasakaalu, mitte sünteesivoogu. Membraanipotentsiaali sondid, nagu TMRM või JC-10, näitavad, kas laengugradient püsib. Ometi fluorestseeruvad need samas nähtava valguse vahemikus, kus värvaine neelab, mistõttu raskendab ka nende tõlgendamist allesjäänud sinine värving ning iga värvainekoguse juures on vaja ainult värvainet sisaldavaid tühikatseid. Hingamisahela komplekside alaühikute transkriptide mõõtmised väldivad optilisi mõjusid täielikult ja kajastavad tundide jooksul toimunud muutusi, täiendades minutiskaalal tehtavaid plaadimõõtmisi.
Metüleensinise ainevahetusmõju puudutava väite minimaalne usutav tõenduspakett on seega järgmine: resasuriinitulemus koos kontrollidega 1 kuni 4, lisaks üks teisel füüsikalisel põhimõttel põhinev mitteresasuriinne tulemusnäitaja ning selgelt sõnastatud seisukoht, kas muutus peegeldab rakkude arvu, redutseerivate ekvivalentide voogu raku kohta või mõlemat. Väiksema tõendusmaterjali korral ei saa lugeja eristada aeglustunud ainevahetust nõrgemalt helendavast süvendist.
Häirekontrolli tööleht
Kopeerige see tööleht laboripäevikusse iga katse jaoks, milles värvainet kasutatakse koos redoksindikaatoriga. See on selle artikli jaoks loodud töövahend: täitke iga värvainekontsentratsiooni kohta üks rida.
A. Signaalirajad. Märkige iga kontsentratsiooni kohta: eeldatav monomeeride või dimeeride ülekaal (madal mikromolaarne kontsentratsioon võrreldes kümnete mikromoolidega liitri kohta ja kõrgemate kontsentratsioonidega), süvendi lõpliku sisu neelduvus 590 nm juures rakuvabas süvendis ning lisatud resorufiini saagise protsent. Kui saagis langeb alla ligikaudu 90 protsendi, käsitlege kõiki selle värvainekoguse juures saadud fluorestsentsiväärtusi optiliselt vähendatuna, mitte bioloogiliselt täpsena.
B. Keemiakontroll. Märkige igal mõõtmishetkel rakuvaba värvaine ja reaktiivi segu fluorestsents protsendina ainult reaktiivi sisaldava kontrolli lähtetasemest. Kui kõrvalekalle ajaga suureneb, reageerib värvaine analüüsi ajal indikaatorsüsteemiga ning ainult lõpp-punktis tehtud mõõtmised eksitavad. Kaaluge kineetilisi mõõtmisi või teist indikaatorit.
C. Bioloogiline ristkontroll. Nimetage selle katse jaoks valitud sõltumatu mõõtmismeetod, selle enda värvainega tühikatse ja oodatav tulemus juhul, kui resasuriinitulemus on tõeline. Tegelik ainevahetuse pärssumine peaks muutma sõltumatut tulemusnäitajat kooskõlalises suunas. Kui sõltumatu tulemusnäitaja ei ühti resasuriinitulemusega, ärge usaldage veel kumbagi tulemust ning kujundage katse ümber, mitte ärge võtke nende kahe keskmist.
D. Järelduslause. Kirjutage üks lause järgmises vormis: nimetatud värvainekoguse ja arengujärgu juures muutus resasuriinisignaal nimetatud ulatuses, millest nimetatud osa on rakuvaba artefakt, ning sõltumatu tulemusnäitaja (on kooskõlas või ei ole kooskõlas). Kui mõni kirje on tühi, ei ole katse lõpetatud.
Metüleensinine on endiselt kasulik ainevahetuse uurimise vahend ning sebrakalade uuring näitab tegelikke mitokondriaalseid mõjusid koguste juures, mida paljud uurimisasutused iga päev äravoolu valavad. Värvaine nõuab lihtsalt mõõtmist vahenditega, mille tööd see ei saa mõjutada. Lisage ainult värvainet sisaldavad süvendid, lisandi saagise katse ja üks teistsugusel füüsikalisel põhimõttel põhinev mõõtmismeetod ning häire lakkab olemast lõks ja muutub arvuliselt väljendatavaks suuruseks.