
Artikkel
Metüleensinine ja lämmastikmonooksiid: NOS, cGMP ja veresoonte signaaliedastus
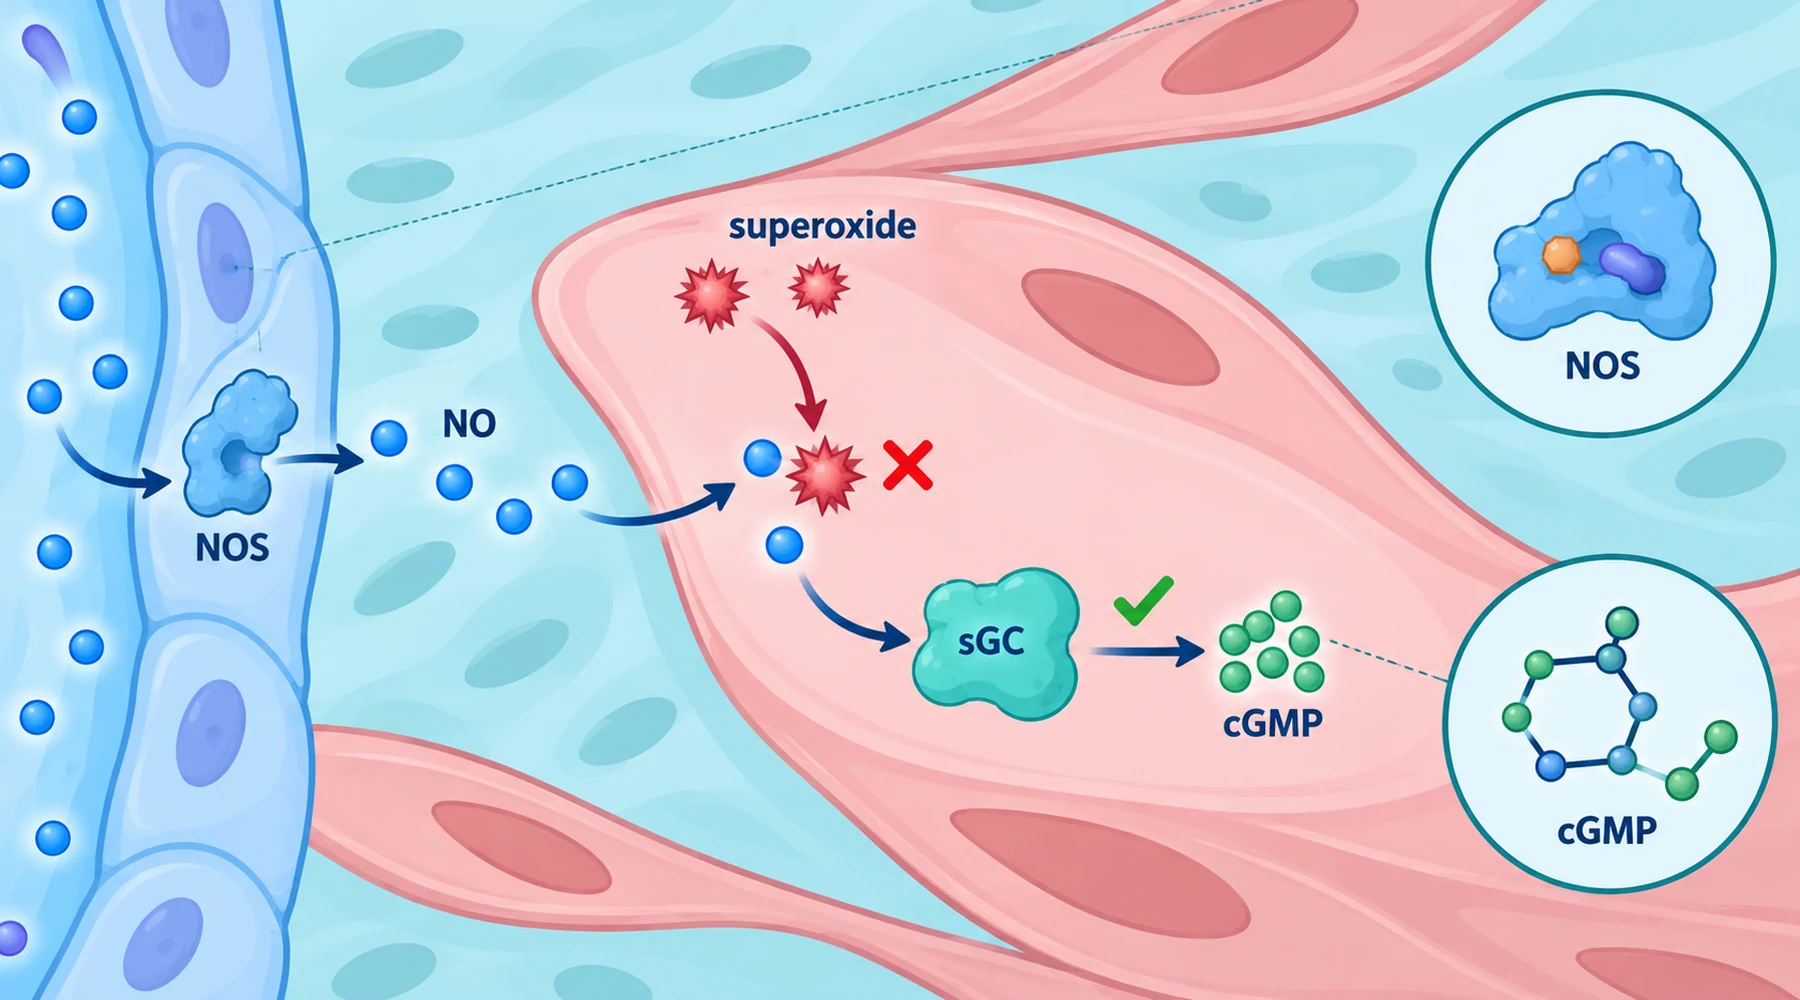
Küsimus kõlab lihtsalt: kas metüleensinine pärsib lämmastikmonooksiidi? Laboris jaguneb vastus neljaks eraldi küsimuseks ning igaüht tuleb kontrollida erineva katsega. Nende segiajamine on peamine põhjus, miks metüleensinise ja lämmastikmonooksiidi kohta kirjutatu mõjub kindlameelselt, kuid ebamääraselt.
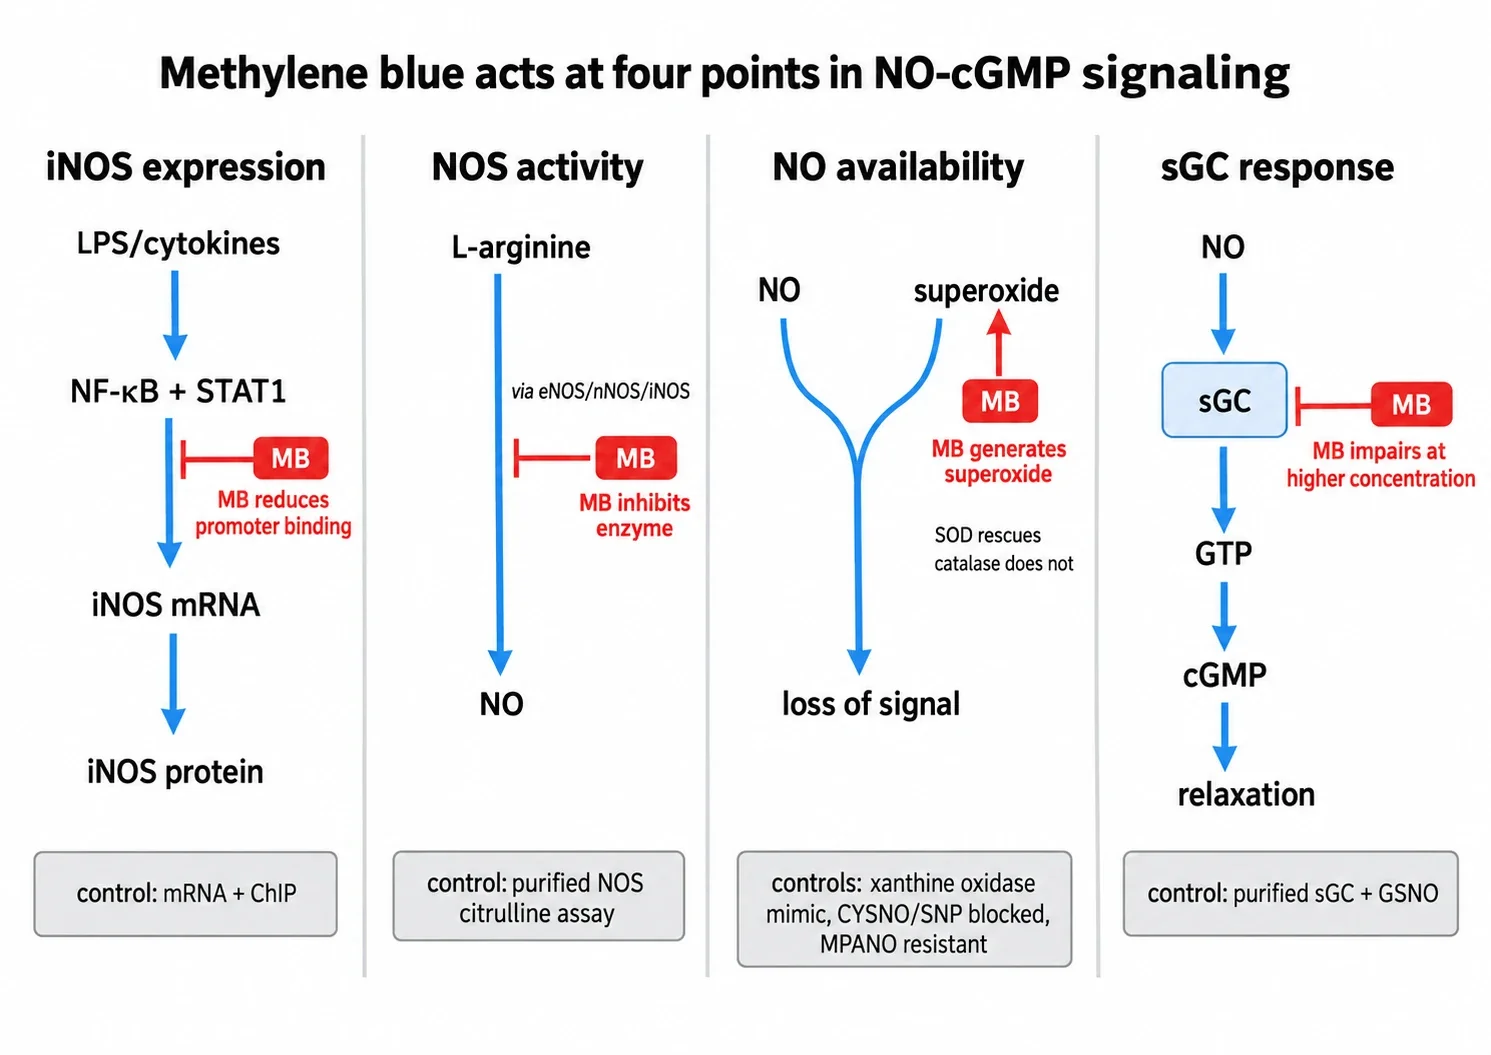
Kujutlege lämmastikmonooksiidi signaali nelja lüliga ahelana. Geen transkribeeritakse, et valmistada lämmastikmonooksiidi süntaasi. Ensüüm muudab arginiini lämmastikmonooksiidiks. Gaas difundeerub oma sihtmärgini, enne kui reageerib millegi muuga. Lahustuv guanülaattsüklaas tuvastab selle ja toodab tsüklilist GMP-d. Metüleensinise mõju kohta igale lülile on avaldatud uuringuid, kuid tõendid pärinevad erinevatest katsepreparaatidest, eri kontsentratsioonidest ja eri isovormidest. Tulemus ühe lüli kohta ei tõenda toimet teisele.
Klassikaline ahel lihtsas sõnastuses
Veresoone seinas kulgeb tavapärane järjestus järgmiselt. Stiimul mõjub endoteelirakule. Endoteelne lämmastikmonooksiidi süntaas, mida nimetatakse eNOS-iks või NOS3-ks, tekitab väikese lämmastikmonooksiidipulsi. Gaas difundeerub naabruses asuvasse silelihasrakku, seondub lahustuva guanülaattsüklaasi redutseeritud rauaga heemrühmaga ning kiirendab GTP muundumist tsükliliseks GMP-ks. Tsükliline GMP aktiveerib proteiinkinaas G, kaltsiumi regulatsioon muutub ja lihas lõõgastub.
On ka teine ahel, mida tasub eraldi käsitleda. Infektsiooni või tsütokiinidega kokkupuute ajal transkribeerivad rakud teist ensüümi, indutseeritavat lämmastikmonooksiidi süntaasi ehk iNOS-i, mida nimetatakse ka NOS2-ks. See tekitab suuremaid ja kauem kestvaid lämmastikmonooksiidivooge kui eNOS. Kolmas isovorm, neuronaalne NOS ehk nNOS, kuulub veel ühte konteksti. Kui teadusartiklis mainitakse lämmastikmonooksiidi süntaasi isovormi täpsustamata, peatuge ja kontrollige, millist neist mõõdeti. Ülevaade sellest, kuidas metüleensinine elektrone üle kannab, rõhutab sama asja redokssihtmärkide puhul üldiselt: vahendaja ei tee üksi midagi ning tulemust määrab partner kummaski otsas.
Ka mõõdetud tsükliline GMP on koondnäitaja, mitte otsene ensüümianalüüs. Selle tase peegeldab tsüklaasi sünteesi, millest on lahutatud fosfodiesteraaside põhjustatud lagundamine, eeskätt PDE5 toime veresoonte silelihases. Tsüklilise GMP vähenemine tähendab seega, et detektorini jõudis vähem signaali. See ei näita iseenesest, milline lüli üles ütles.
Lüli 1: iNOS-ensüümi toodetakse vähem
Bakteriaalse lipopolüsahhariidi, gammainterferooni või mõlemaga stimuleeritud hiire makrofaagides takistas metüleensinine iNOS-valgu oodatud suurenemist ja pärssis tugevalt iNOS-i informatsiooni-RNA-d, nagu näitasid makrofaagide transkriptsioonikatsed. Kõnekas on see, mis ei muutunud. Inhibiitori I kappa B alfa lagundamine, NF kappa B ja STAT1 fosforüülimine ning nende faktorite liikumine rakutuuma jäid suuresti muutumatuks. Vähenes nende seondumine DNA-ga; seda kinnitas kromatiini immunosadestamine, mis näitas vähenenud seondumist iNOS-i promootorile.
See on geeniregulatoorne toime, mis eelneb ensüümi hulga muutusele, mitte olemasoleva ensüümi äge blokeerimine. See kuulub põletikulise signaaliedastuse juurde, kus transkriptsioonifaktorid peavad seonduma promootoriga, enne kui valk tekib. See ei ütle otseselt midagi konstitutiivse eNOS-i kohta puhkeolekus veresoones ning seda tuleks ka vastavalt kirjeldada.
Lüli 2: olemasolev NOS-ensüüm töötab aeglasemalt
Ühes rotiuuringus uuriti teistsugust tasandit. Teadvusel isasrottidele manustati veenisiseselt lipopolüsahhariidi ning kolm tundi hiljem kas füsioloogilist lahust või metüleensinist annuses 3 mg kg kohta veenisiseselt. Lämmastikmonooksiidi süntaasi aktiivsust hüpotalamuse mediaalses basaalosas mõõdeti märgistatud arginiini muundumise kaudu tsitrulliiniks hüpotalamuse NOS-i aktiivsuse uuringus. Stress koos üksnes füsioloogilise lahusega kutsus esile mõningase kaltsiumist sõltumatu aktiivsuse ning lipopolüsahhariid suurendas selle ligikaudu kümnekordseks võrreldes kontrolltasemega. Metüleensinine kõrvaldas mõlemad indutseeritud komponendid. Kaltsiumist sõltuv konstitutiivne aktiivsus selles koes selle annuse ja ajahetke juures ei muutunud.
Lugege seda tulemust täpselt sellisena, nagu see on kirjas: neis tingimustes pärsiti mõõdetud iNOS-tüüpi aktiivsust. See ei ole geeniekspressiooni mõõtmine ega tõend püsivast selektiivsusest iNOS-i suhtes võrreldes eNOS-i või nNOS-iga. Puhastatud ensüümidega tehtud katsed rõhutavad vajadust ettevaatlikkuseks. Puhastatud lämmastikmonooksiidi süntaasi otsestes analüüsides blokeeris metüleensinine tsitrulliini moodustumise täielikult kontsentratsioonil 30 mikromooli liitri kohta. Poolmaksimaalse pärssimise kontsentratsioon oli ilma superoksiidi dismutaasita ligikaudu 5.3 mikromooli liitri kohta ja koos sellega 9.2 mikromooli liitri kohta, nagu kirjeldati puhastatud NOS-i ja guanülaattsüklaasi võrdluses. Eraldi puhastatud nNOS-i uuring osutas ensüümiga seotud heemi oksüdeerumisele. Praktiline järeldus on, et NOS-i otsene pärssimine esineb isoleeritud süsteemides tõepoolest, kuid hüpotalamuse tulemust ei saa laiendada üldiseks väiteks, et metüleensinine jätab kõik konstitutiivsed NOS-id kõikjal puutumata.
Lüli 3: lämmastikmonooksiid kaob enne sihtmärgini jõudmist
Kõige selgem tõend selle kohta, et tsüklilise GMP vähenemist võib selgitada miski muu kui ensüümi blokeerimine, pärineb küüliku kopsuarteri kultiveeritud silelihasrakkudest. Katsekavandis jäeti endogeenne NOS täielikult kõrvale, lisades otse lämmastikmonooksiidi doonoreid, ning seejärel uuriti, kas metüleensinine pärsib ikkagi tsüklilise GMP vastust veresoonte silelihase superoksiidiuuringus.
Kolme doonorit katsetati kontsentratsioonidel 1 kuni 100 mikromooli liitri kohta: S-nitroso-L-tsüsteiini, naatriumnitroprussiidi ja stabiilset deamineeritud analoogi nimega MPANO. Kõik suurendasid tsüklilise GMP sisaldust ligikaudu 1.5 kuni 12 korda. Metüleensinine kontsentratsioonil 10 mikromooli liitri kohta pärssis kahe esimese vastust 51 kuni 100 protsenti ning jättis MPANO vastuse muutumatuks. Kui metüleensinine lihtsalt blokeeriks tsüklaasi katalüütilist saiti, oleks sellist doonorite suhtes valikulist toimet raske selgitada, sest kõik kolm toimivad sama järgneva ensüümi kaudu.
Kolm kontrollkatset sidusid seejärel mehhanismi superoksiidiga. Esiteks tekitas rakuvälise superoksiidi tootmine ksantiini ja ksantiini oksüdaasiga sama mustri: CYSNO ja nitroprussiidi vastused blokeeriti, MPANO oma jäi puutumata. Teiseks põhjustas metüleensinine silelihasrakkudes annusest ja ajast sõltuvat superoksiidi tootmist, mida mõõdeti tsütokroom c redutseerumise kaudu. Kolmandaks takistas superoksiidi dismutaas pärssimist täielikult, katalaas aga mitte. See osutab, et selles katsepreparaadis oli vahetult toimiv ühend superoksiid, mitte vesinikperoksiid.
Katse kaaskultuuriversiooni tasub kirjeldada, sest see näitab toime ruumilist paiknemist. Katteklaasidel olevaid endoteelirakke kasvatati lühiajaliselt koos silelihasrakkudega, mistõttu basaalselt vabanev endoteelifaktor suurendas silelihase tsüklilise GMP sisaldust kolm kuni kaheksa korda. Kummagi rakurühma eeltöötlus metüleensinisega vähendas seda signaali ning superoksiidi dismutaas taastas osaliselt signaali pärast endoteeli eeltöötlust. Teisisõnu ei pea metüleensinine üldse toimima signaali tuvastava silelihasraku sees. See võib signaali nõrgendada, kõrvaldades virgatsaine teel sihtmärgini. Metüleensinise uuringute lugemise juhend käsitleb seda üldreeglina: nimetage enne molekulaarse sihtmärgi nimetamist rakuline või rakuväline ruum, kus sekkumine toimus.
Selle nimetamine NOS-i pärssimiseks oleks vale. Doonorite toimimiseks ei olnud süntaasi etappi vaja, kuid signaal vähenes sellegipoolest.
Lüli 4: detektor ise reageerib vähem
Otsene toime lahustuvale guanülaattsüklaasile on olemas, kuid kontsentratsioonid on olulised. Eespool viidatud puhastatud ensüümide võrdluses vajas lämmastikmonooksiidiga stimuleeritud tsüklaas poolmaksimaalseks pärssimiseks metüleensinist ligikaudu 60 mikromooli liitri kohta, samas kui NOS-i poolmaksimaalne pärssimine ilmnes ligikaudu 5 kuni 9 mikromooli liitri kohta. Isegi 1 millimool liitri kohta põhjustas vaid osalise maksimaalse blokeerimise. See tähendab ligikaudu kuue- kuni üheteistkordset erinevust. Väikese mikromolaarse kontsentratsiooniga rakukatset, mis vähendab tsüklilist GMP-d, ei saa seega nimetada selektiivseks tsüklaasi pärssimiseks üksnes tsüklilise GMP näidu põhjal.
Hilisem redoksuuring lisas teise ettevaatusmomendi: metüleensinine inaktiveeris lämmastikmonooksiidiga aktiveeritud tsüklaasi mehhanismi kaudu, mis erines heemi raua lihtsast oksüdeerumisest õhu toimel. Seega võib detektori talitlus olla häiritud, kuid keemiline mehhanism ei ole lõplikult selge ning kontsentratsioonide erinevus tähendab, et väikeste mikromolaarsete kontsentratsioonide korral tuleks esmalt välistada superoksiidi ja NOS-iga seotud toimed. Siia kuulub ka fosfodiesteraasi kontroll. Kui lagundamist ei mõõdetud ega blokeeritud, sobib tsüklilise GMP väiksema kogunemisega nii vähenenud süntees, kiirem lagundamine kui ka mõlemad koos.
Miks seda ei saa taandada üheks vererõhuväiteks
Iga lüli tõendati erinevas süsteemis. Makrofaagide transkriptsioon ei ole hüpotalamuse ensüümiaktiivsus. Hüpotalamuse aktiivsus pärast lipopolüsahhariidi ei ole endoteeli puhkeoleku toonus. Kaaskultuuris basaalselt vabanev endoteelifaktor ei ole agonistiga stimuleeritud vasodilatatsioon. Kultiveeritud kopsuarterirakud metüleensinise kontsentratsioonil 10 mikromooli liitri kohta ei ole inimese vereringe. Nende koondamine väiteks, et metüleensinine tõstab vererõhku lämmastikmonooksiidi blokeerides, heidab kõrvale just need eristused, mille säilitamiseks kontrollkatsed kavandati.
Kolm kontrollküsimust hoiavad käsitluse täpsena. Esiteks nimetage isovorm: eNOS veresoonte puhkeoleku toonuse puhul, iNOS indutseeritud põletikulise voo puhul ning nNOS neuronaalsetes ja mõnes puhastatud ensüümi kontekstis. Teiseks nimetage lämmastikmonooksiidi signaali allikas: endogeenne süntees, basaalse taseme vabanemine endoteelist või konkreetne doonor, näiteks CYSNO, nitroprussiid või MPANO, sest stabiilne doonor oli metüleensinise toime suhtes resistentne, labiilsed aga mitte. Kolmandaks nimetage kontsentratsioon ja signaali taastav sekkumine: taastumine superoksiidi dismutaasi toimel osutab superoksiidile, katalaasi toime puudumine räägib vesinikperoksiidi vastu selles katsepreparaadis, sama mustri tekitamine ksantiini oksüdaasiga näitab selle mehhanismi piisavust ning puhastatud ensüümide analüüsid eristavad otsest mõju katalüüsile signaali kaost teel sihtmärgini.
Lühikokkuvõte on järgmine. Metüleensinist on parem käsitleda lämmastikmonooksiidist tsüklilise GMP-ni kulgeva signaaliedastuse mitmes kohas mõjutajana, mitte selektiivse tsüklaasi blokeerijana. Olenevalt katsepreparaadist ja kontsentratsioonist võib see vähendada iNOS-i transkriptsioonifaktorite seondumist, pärssida otseselt NOS-ensüüme, vähendada lämmastikmonooksiidi kättesaadavust superoksiidi tekitamise kaudu ning häirida lämmastikmonooksiidiga aktiveeritud tsüklaasi talitlust. Tsüklilise GMP signaaliedastuse roll veresoonte uuringutes ja rakukatsetes kasutatavate lämmastikmonooksiidi doonorite võrdlus käsitlevad kumbki üht neist harudest üksikasjalikumalt ning meetodid redokstoimete eristamiseks ensüümidele avalduvatest toimetest selgitavad, miks superoksiidi dismutaasi, katalaasi ja stabiilse doonori kontrolli selles kirjanduses nii sageli koos kasutatakse.
Väike tsüklilise GMP väärtus pärast metüleensinist näitab, et ahel on katkenud. Ainult kontrollkatsed näitavad, milline lüli katkes.