
Հոդված
Մեթիլենային կապույտը և վիտամին C-ն. ինչու կարող է լուծույթն անգույն դառնալ
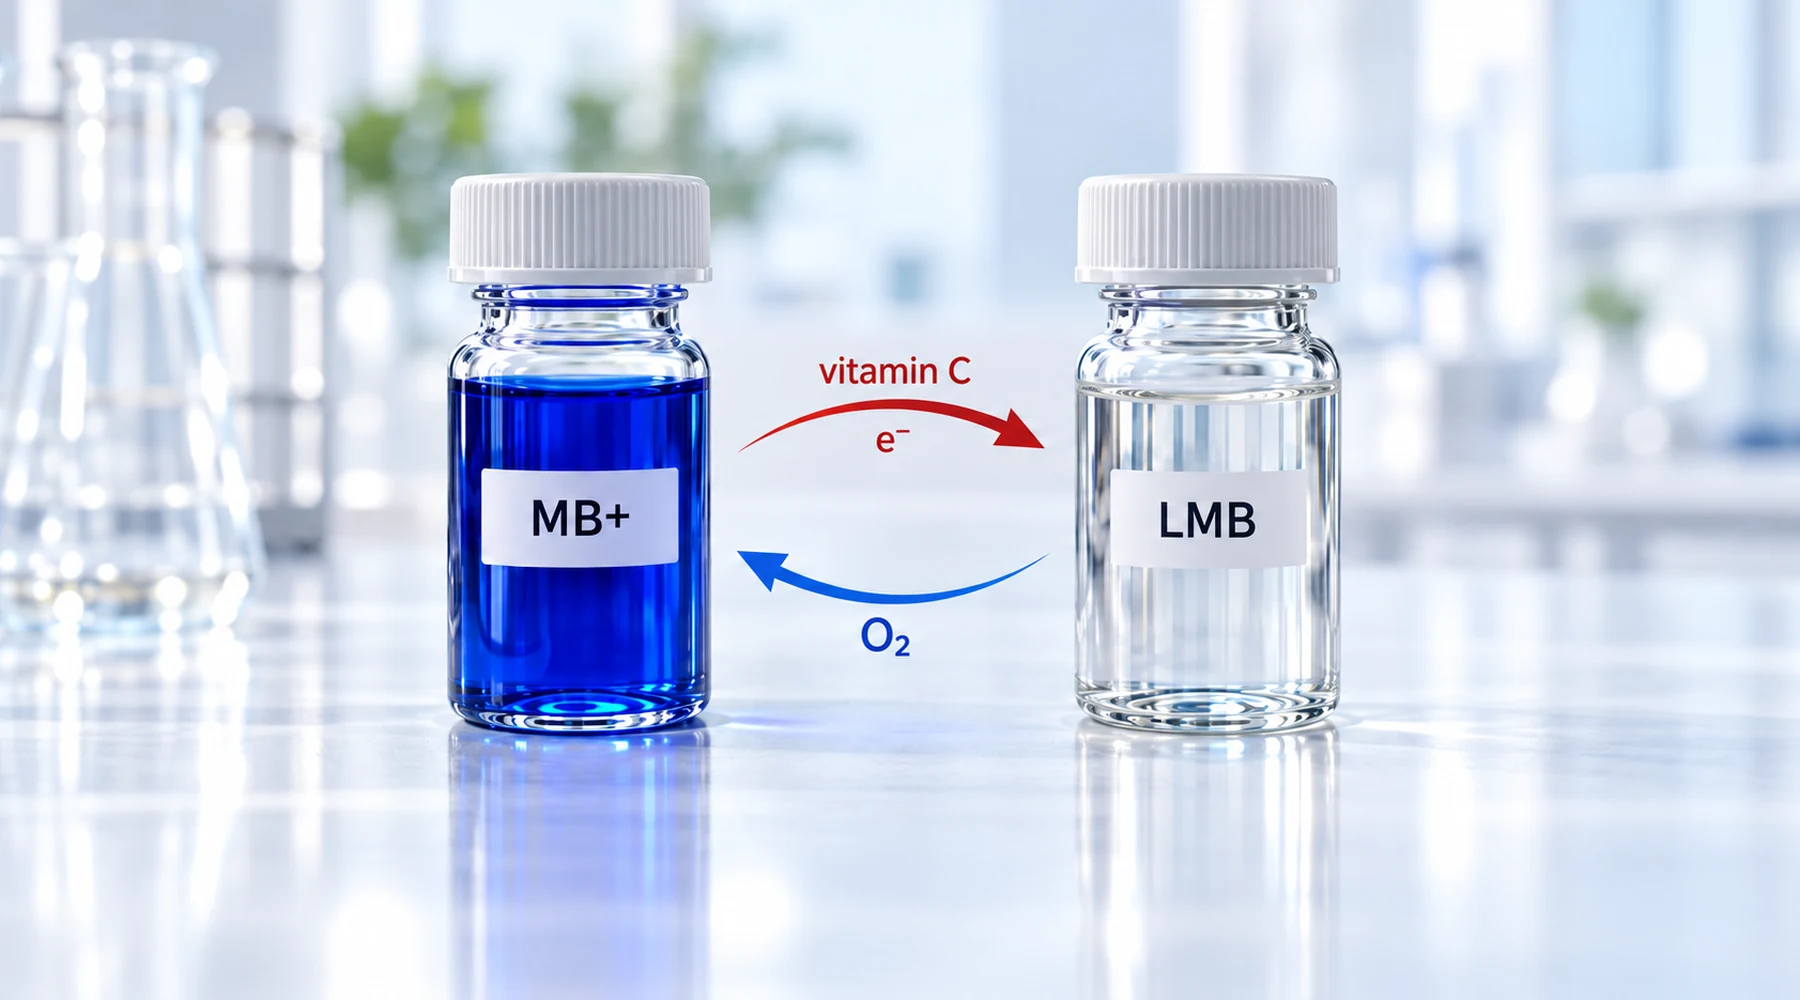
Կապույտ մեթիլենային կապույտի լուծույթով բաժակի մեջ վիտամին C-ի հաբ եք ավելացնում, խառնում և դիտում, թե ինչպես է կապույտ գույնը խամրում։ Մեկ րոպե անց հեղուկը սովորական ջրի տեսք ունի։ Գայթակղիչ է եզրակացնել, որ վիտամին C-ն քայքայել կամ չեզոքացրել է ներկանյութը։
Այդ պատկերացումը սխալ է, և սխալը կարևոր հետևանքներ ունի։ Ձեր դիտածը օքսիդացման վիճակի դարձելի փոփոխություն է, ոչ թե քայքայում։ Ներկանյութը դեռ այնտեղ է։ Համապատասխան պայմաններում դրա գույնը վերադառնում է։
Ներկանյութի երկու վիճակները
Մեթիլենային կապույտն ունի երկու լավ ուսումնասիրված վիճակ։ Օքսիդացված ձևը, որը սովորաբար գրվում է MB+, ունի զուգորդված օղակների ընդարձակ համակարգ, որն ուժեղ կլանում է մոտ 664 nm տիրույթում։ Այդ կլանումն էլ պայմանավորում է կապույտ գույնը։ Վերականգնված ձևը՝ լեյկոմեթիլենային կապույտը (LMB), կորցրել է տեսանելի տիրույթի այդ ուժեղ կլանման շերտը, ուստի նոսր լուծույթն անգույն է թվում։
Ներկանյութը պատկերացրեք որպես էլեկտրոնների փոքր վերալիցքավորվող պահեստ։ Էլեկտրոններով և պրոտոնով լիցքավորելն այն գունազրկում է։ Այդ էլեկտրոնների հեռացումը վերականգնում է գույնը՝
MB+ + H+ + 2e- to LMB (colorless)
Վիտամին C-ն ապահովում է լիցքը։ Ասկորբատն օքսիդանում է դեպի դեհիդրոասկորբատ և տրամադրում երկու վերականգնիչ համարժեք, ուստի իդեալականացված հաշվարկով ասկորբատի մեկ մոլը վերականգնում է մոտ մեկ մոլ MB+։ Իրական լաբորատոր լուծույթներում հաշվարկն ավելի բարդ է, քանի որ լուծված թթվածինը մրցակցում է նույն էլեկտրոնների համար։ Այդ պատճառով լուծույթն անգույն պահելու համար սովորաբար ասկորբատի ավելցուկ է անհրաժեշտ։
Պարտադիր չէ, որ մեխանիզմը լինի մեկ պարզ երկէլեկտրոնային փուլ։ Մասնակցում են ռադիկալային և մասնակի վերականգնված միջանկյալ միացություններ, իսկ ճշգրիտ ուղին փոխվում է՝ կախված լուծիչից, թթվայնությունից և կոնցենտրացիայից։ Սակայն վերջնական արդյունքը նույնն է։ Կապույտ MB+-ը դառնում է անգույն LMB, իսկ վիտամին C-ն այդ ընթացքում սպառվում է։
Ինչու է թափահարումը վերադարձնում կապույտ գույնը
Այս փորձի դասական ուսումնական տարբերակն ունի երկրորդ գործողություն։ Անգույն սրվակը հանգիստ թողեք, և այն կմնա անգույն։ Թափահարեք, և կապույտ գույնը կվերադառնա։ Սպասեք, և այն նորից կխամրի։
Գույնը վերադարձնողը թթվածինն է։ Լուծված O2-ը LMB-ն կրկին օքսիդացնում է դեպի MB+, ուստի թափահարումը չի ակտիվացնում ներկանյութը։ Այն համալրում է լուծված թթվածինը՝ սրվակի վերին ազատ տարածության օդը խառնելով հեղուկին, և այդպիսով արագացնում է հակադարձ ռեակցիան։ Քանի դեռ ասկորբատի պաշար է մնացել, կրկին առաջացած MB+-ը նորից վերականգնվում է՝ ստեղծելով ծանոթ ցիկլը. հանգստի դեպքում՝ անգույն, թափահարելիս՝ կապույտ, սպասելուց հետո՝ կրկին անգույն։ Երբ ասկորբատը սպառվում է, թթվածինը վերջնականապես գերակշռում է, և լուծույթը մնում է կապույտ։
Այդ պատճառով մեթիլենային կապույտի և վիտամին C-ի ցուցադրական փորձը զգայուն է անոթի երկրաչափության նկատմամբ։ Փոքր վերին ազատ տարածությամբ փակ կյուվետում լուծույթն ավելի երկար է մնում անգույն, քան լայն լաբորատոր բաժակում։ Ինտենսիվ օդավորումը կրճատում է անգույն փուլը։ Ուստի փորձը նկարագրելիս պետք է նշել թթվածնային պայմանները, ոչ միայն ռեագենտների քանակները։

Վերահսկվող ցուցադրական փորձ և դրա պայմանները
Այս հոդվածի շապիկի պատկերը ցույց է տալիս նախատեսված համեմատությունը. կապույտ MB+ հսկիչ նմուշի կողքին ասկորբատով վերականգնված LMB նմուշն է՝ նույն լուսավորության պայմաններում։ Արդյունքը վերարտադրելի դարձնելու համար հաստատուն պահեք արագությունը փոխող յուրաքանչյուր փոփոխական՝
| Փոփոխական | Առաջարկվող պայման | Ինչու է կարևոր |
|---|---|---|
| Մեթիլենային կապույտ | 10-ից 90 micromolar ֆոսֆատային բուֆերում, pH 7 | Համապատասխանում է հրապարակված օքսիդավերականգնման ուսումնասիրություններում կիրառված կոնցենտրացիաներին և պահում է կլանման չափումները սանդղակի սահմաններում |
| Ասկորբատ | 1 mM նատրիումի ասկորբատ՝ թարմ պատրաստված | Ապահովում է վերականգնիչ համարժեքների ավելցուկ, որպեսզի գունազրկումն ավարտվի |
| Բուֆեր և pH | 50 mM ֆոսֆատ, pH 7.0, սենյակային ջերմաստիճան | Որոշում է ասկորբատի քիմիական ձևերի բաշխումը և LMB-ի կայունությունը |
| Լույս | Թույլ շրջակա լուսավորություն, նշել լուսավորման տևողությունը | Պայծառ լույսն ավելացնում է ֆոտոօքսիդավերականգնման և պերօքսիդի առաջացման ուղիներ |
| Թթվածին | Մեկ սրվակը՝ օդով հագեցած, մյուսը՝ ազոտով փչահարված | Առանձնացնում է պարզ օքսիդավերականգնման ցիկլը վերաօքսիդացումից |
| Մետաղներ | Անալիտիկ մաքրության ռեագենտներ և մեկ հսկիչ նմուշ՝ քելատացնող նյութով | Երկաթի հետքային քանակները հնարավորություն են տալիս Ֆենտոնի ռեակցիաներին (տես ստորև) |
Լուսանկարեք երկու սրվակները սահմանված պահերին, օրինակ՝ 0, 1, 5 և 15 րոպե անց, ապա թափահարեք և նորից լուսանկարեք։ Ազոտով փչահարված սրվակը պետք է ամենաերկարը մնա անգույն։ Օդավորված սրվակը թափահարելուց հետո պետք է ավելի արագ կրկին կապտի։ Եթե նմուշը չի կապտում նույնիսկ թափահարելու և օդավորելու դեպքում, կասկածեք անդարձելի քայքայման, ոչ թե պարզ վերականգնման մասին։
Խառնուրդների մշակման մասնագետները նույն տրամաբանությունն են կիրառում ավելի մեծ մասշտաբով։ Խառնուրդում մեթիլենային կապույտի վարքը կախված է ամբողջ օքսիդավերականգնման միջավայրից և բաղադրության պայմաններից։ Կայունության փորձարկման ժամանակ գույնի դիտարկմանը զուգահեռ պետք է գրանցել pH-ը, լուծված թթվածինը, լույսի չափաբաժինը և մետաղների հետքային քանակները։
pH-ը, լույսը և կոնցենտրացիան ազդում են տարբեր ուղղություններով
Սկսնակները հաճախ հարցնում են՝ թթո՞ւն, թե՞ հիմքն է արագացնում ռեակցիան։ Ճշգրիտ պատասխանն այն է, որ pH-ն ազդում է ցիկլի երկու տարբեր փուլերի վրա։ Թթվային ջրային պայմաններում պրոտոնների առկայությունը կարող է արագացնել ասկորբատի միջոցով MB+-ի վերականգնման փուլը։ Սակայն LMB-ն ինքը թթվային միջավայրում շատ ավելի դիմացկուն է օդով օքսիդացման նկատմամբ և շատ ավելի արագ է վերաօքսիդանում pH-ի բարձրացման հետ։ Ուստի թթվային նմուշը կարող է արագ գունազրկվել և հետո մնալ անգույն, մինչդեռ հիմնային նմուշը արագ գունազրկվում և կրկին կապտում է։ Երկու դիտարկումներն էլ ճիշտ են իրենց համապատասխան պայմաններում։
Լույսն ավելացնում է առանձին ուղի։ Լույսով գրգռված մեթիլենային կապույտն անցնում է երկարատև տրիպլետային վիճակի, որում էլեկտրոնների փոխանցում է տեղի ունենում ասկորբատի և թթվածնի հետ։ Այդ ֆոտոքիմիան կարող է արագացնել գունազրկումը, վերադարձնել գույնը կամ առաջացնել թթվածնի ռեակտիվ ձևեր՝ կախված ալիքի երկարությունից, թթվածնի մակարդակից և կոնցենտրացիայից։ Լուսավորությունը դիտարկեք որպես փորձարարական փոփոխական և գրանցեք այն։
Կոնցենտրացիան որոշում է, թե որ ուղղությունն է գերակշռում։ Ավելի շատ ասկորբատը նշանակում է ավելի արագ գունազրկում և թափահարման ու գույնի մարման ավելի շատ ցիկլեր։ Ավելի շատ ներկանյութը պահանջում է համամասնորեն ավելի շատ վերականգնիչ համարժեքներ։ Ավելի շատ լուծված թթվածինը նպաստում է կապույտ գույնին։ Ներկանյութի բարձր կոնցենտրացիաների դեպքում լրացուցիչ բարդություն է առաջանում, քանի որ մեթիլենային կապույտի մոլեկուլները միավորվում են՝ կազմելով փոփոխված սպեկտրներով դիմերներ և ագրեգատներ։ Ուստի ներկանյութի քանակը կրկնապատկելն այլևս նույն վարքի կրկնապատկման չի հանգեցնում։
Արդյո՞ք վիտամին C-ն չեզոքացնում է մեթիլենային կապույտը
Սա այն հարցն է, որն ընկած է մեթիլենային կապույտի և վիտամին C-ի վերաբերյալ որոնումների մեծ մասի հիմքում, և այն ճշգրիտ պատասխան է պահանջում։ Ո՛չ, գույնի կորուստը չեզոքացում չէ։ Քրոմոֆորը փոխել է իր վիճակը, սակայն ֆենոթիազինային միջուկը և դրա օքսիդավերականգնման ակտիվությունը պահպանվում են լուծույթում։ Ռեակցիան դարձելի է օդի ազդեցությամբ, իսկ վերականգնված ձևն ինքնին ռեակտիվ է. LMB-ն MB+-ի համեմատ լիցք չունի և լիպոֆիլ է, իսկ բջջային փորձերում այն անցնում է թաղանթների միջով, նախքան ներսում կրկին օքսիդանալը։
Բջջային ուսումնասիրությունների գրականությունը սա հաստատում է կոնկրետ տվյալներով։ Կուլտիվացված էնդոթելային բջիջներում ցածր micromolar կոնցենտրացիաներով մեթիլենային կապույտը խթանում է պենտոզաֆոսֆատային ուղու ակտիվությունը՝ միաժամանակ օքսիդացնելով NADPH-ը և NADH-ը։ Մոտ 5 micromolar-ից բարձր կոնցենտրացիաներում այն բարձրացնում է ներբջջային օքսիդանտային ցուցիչները, երբ գլյուկոզային ապահովումը բացակայում է։ Ասկորբատով հարստացված բջիջները ներկանյութի ազդեցության տակ աստիճանաբար օքսիդացնում են այդ ասկորբատը, իսկ ասկորբատի պաշարը միայն մասամբ է ճնշում օքսիդանտային ազդանշանը, ինչպես հաղորդվում է ներկանյութի էնդոթելային օքսիդավերականգնման ուսումնասիրության մեջ։ Այլ կերպ ասած՝ ասկորբատը մասնակցում է օքսիդավերականգնման գործընթացներին։ Այն չի անջատում ներկանյութի ակտիվությունը։
Լույսն այս պատկերը դարձնում է ավելի ակնհայտ։ Լուսավորման պայմաններում մեթիլենային կապույտի, ասկորբատի և թթվածնի խառնուրդները սպառում են թթվածին, կուտակում ջրածնի պերօքսիդ և կատալիտիկ երկաթի առկայության դեպքում Ֆենտոնի ռեակցիաներով առաջացնում հիդրօքսիլային ռադիկալ, ինչպես ցույց են տվել սպինային որսման և թթվածնի կլանման փորձերը։ Հիդրօքսիլային ռադիկալները կարող են անդարձելիորեն վնասել կենսամոլեկուլները և քայքայել հենց ներկանյութը։ Հետևաբար լույսի և երկաթային աղտոտման պայմաններում ընդմիշտ գունաթափված նմուշը չի վկայում պարզ վերականգնման մասին։ Այն կարող է վկայել կողմնակի քիմիական գործընթացներով քայքայման մասին։
Ինչը չի ապացուցում անգույն լուծույթը
Երեք տարածված եզրակացություն դուրս են գալիս ապացույցների սահմաններից, և դրանցից պետք է խուսափել լաբորատոր գրառումներում, պիտակներում և ուսումնական սլայդներում։
Նախ՝ անգույնը չի նշանակում անվնաս։ LMB-ն թթվածնի և մետաղների հետքային քանակների հետ կարող է նպաստել պերօքսիդի և ռադիկալների առաջացման ուղիներին, հատկապես լույսի ազդեցությամբ։ Անվնասությունը պետք է գնահատել թունաբանությամբ, ոչ թե գունաչափությամբ։
Երկրորդ՝ անգույնը չի նշանակում աղտոտումից մաքրված։ Ներկանյութը և դրա օքսիդավերականգնման գործընկերները դեռ առկա են։ Թափված նյութերը, արտահոսքերը և ներկված նյութերը չեն մաքրվում ասկորբատ ավելացնելով։ Անհրաժեշտ է անալիտիկ հաստատում. այս հարցը քննարկվում է մնացորդների և աղտոտումից մաքրման փորձարկումների գործելակերպում։
Երրորդ՝ անգույն վիճակը չի սահմանում օգտակար համակցված կիրառման ռեժիմ։ Փորձանոթում ընթացող ռեակցիան ոչինչ չի ասում մարդկանց օրգանիզմում ներծծման, հյուսվածքային բաշխման, դեղաչափման կամ փոխազդեցությունների անվտանգության մասին։ Առողջական նպատակով այս երկու նյութերը համատեղելու գայթակղություն ունեցողները նախ պետք է կարդան փոխազդեցությունների և անվտանգության վերաբերյալ գրականությունը և դիմեն մասնագիտական աղբյուրների՝ սրվակում տեսածից եզրակացություններ անելու փոխարեն։
Ճիշտ մեկնաբանությունն ավելի սահմանափակ է, բայց ավելի օգտակար։ Մեթիլենային կապույտի և ասկորբատի համակցությունը օքսիդավերականգնման ցիկլի փոքրածավալ մոդել է. վիտամին C-ն տալիս է էլեկտրոններ, ներկանյութն անգույն է դառնում, թթվածինը հետ է վերցնում էլեկտրոնները, գույնը վերադառնում է, իսկ լույսը, pH-ը, կոնցենտրացիան և երկաթը որոշում են արագությունն ու կողմնակի արգասիքները։ Երբ այս հասկացությունը պարզ է, ցուցադրական փորձը դադարում է հնարք լինելուց և դառնում է ախտորոշիչ միջոց։ Եթե ձեր նմուշն այլ կերպ է իրեն պահում, նախ ստուգեք թթվածնի հասանելիությունը, լույսի չափաբաժինը, pH-ը և մետաղական աղտոտումը, ապա միայն կասկածի տակ դրեք ներկանյութը։